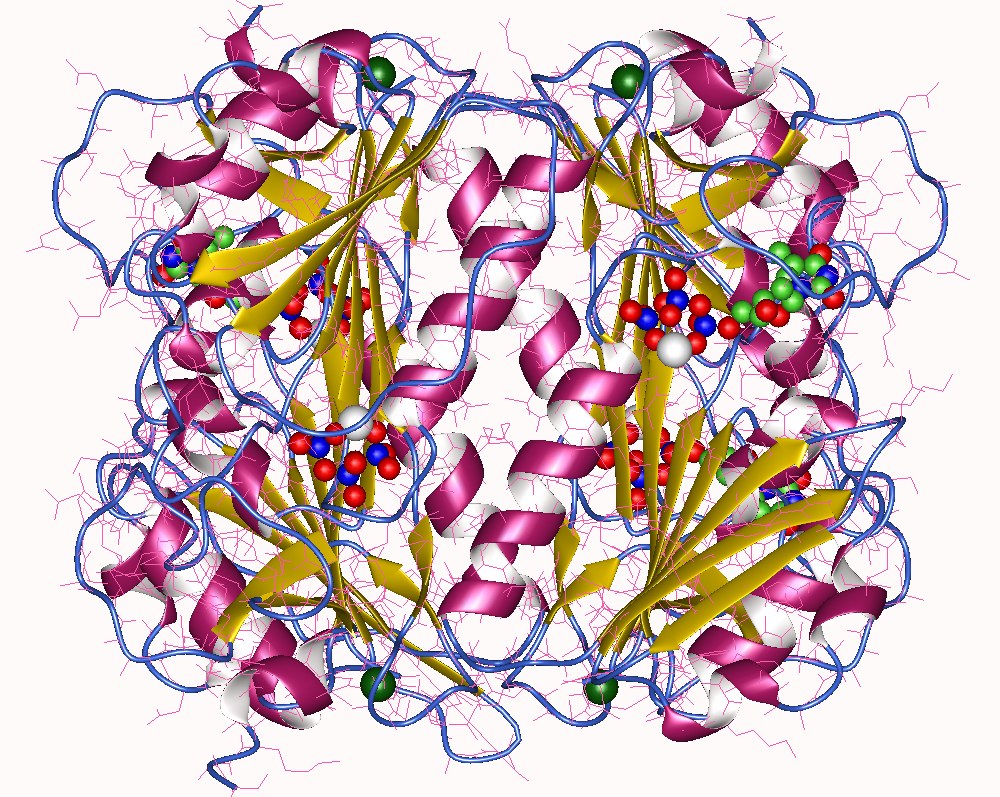
Tymidinkinas är ett enzym, ett fosfotransferas, (ett kinas): 2'- deoxitymidinkinas, ATP -tymidin- 5'- fosfotransferas, EC 2.7.1.21. Det finns i de flesta levande celler. Det finns i två former i däggdjursceller, TK1 och TK2. Vissa virus har också genetisk information för att uttrycka specifika virala tymidinkinaser. Tymidinkinas katalyserar reaktionen:
- THD + ATP → TMP + ADP
där THD är (deoxi)tymidin, ATP är adenosin-5'-trifosfat, TMP är deoxitymidin 5'-fosfat och ADP är adenosin-5'-difosfat. Tymidinkinaser har en nyckelfunktion i syntesen av DNA och därmed vid celldelning, eftersom de är en del av den unika reaktionskedjan för att införa deoxitymidin i DNA. Deoxitymidin finns i kroppsvätskor som ett resultat av nedbrytning av DNA från livsmedel och från döda celler. Tymidinkinas krävs för verkan av många antivirala läkemedel. Det används för att välja hybridomcellinjer för produktion av monoklonala antikroppar. I klinisk kemi används det som en markör vid diagnos, kontroll av behandling och uppföljning av maligna sjukdomar, främst av hematologiska maligniteter.
Historia
Införlivandet av tymidin i DNA demonstrerades runt 1950. Något senare visades det att denna inkorporering föregicks av fosforylering och runt 1960 renades och karakteriserades enzymet.
Klassificering
Två olika klasser av tymidinkinaser har identifierats och ingår i superfamiljen:
- En familjegrupp som omfattar tymidinkinas från herpesvirus samt cellulära tymidylatkinaser,
- En familjegrupp med TK från ryggradsdjur, bakterier, bakteriofag T4, smittkoppsvirus och afrikansk svinpestvirus.
Biokemi
Däggdjursceller har två isoenzymer som är kemiskt mycket olika, TK1 och TK2. Den första hittades först i fetal vävnad, den andra i adult vävnad och initialt benämndes de fetal och adult tymidinkinas. Snart visades att TK1 förekommer i cytoplasma i samband med celldelning (cellcykelberoende) medan TK2 förekommer cellcykeloberoende i mitokondrier. Generna till de två typerna av TK lokaliserades i mitten av 70-talet. Genen för TK1 klonades och sekvenserades. Motsvarande protein har en molekylvikt av ca 25 kD. Normalt förekommer det i vävnad som en dimer, 50 kD. Det kan aktiveras av ATP. Efter aktivering omvandlats det till en tetramer, 100 kD. Rekombinant TK1 kan inte aktiveras och omvandlas till en tetramer på detta sätt, vilket visar att enzym i celler har modifierats efter syntesen. TK1 syntetiseras av cellen under celldelningens S-fas. Efter celldelningen bryts TK1 ned intracellulärt, och går inte över till kroppsvätskor efter normal celldelning. Det finns en återkopplingsreglering av tymidinkinas i cellen: tymidintrifosfat (TTP), produkten av ytterligare fosforylering av tymidin är en inhibitor för tymidinkinas. Detta upprätthåller en balans av mängden av TTP som är tillgängligt för nukleinsyresyntes 5'-Aminothymidine, en icke-toxisk analog av tymidin, stör denna regleringsmekanism och ökar därigenom cytotoxiciteten hos de tymidinanaloger som används som antineoplastiska läkemedel. Gener för virusspecifika tymidinkinaser har identifierats i virus från herpesgruppen.
Fysiologisk bakgrund
Deoxitymidinmonofosfat, produkten av reaktionen som katalyseras av tymidinkinas, fosforyleras i sin tur till deoxitymidindifosfat genom enzymet tymidylatkinas och vidare till deoxitymidintrifosfat genom enzymet nukleosiddifosfatkinas. Trifosfatet inkorporeras i en DNA-molekyl vid en reaktion som katalyseras av ett DNA-polymeras och en komplementär deoxiribonukleinsyra. Deoxitymidinmonofosfat produceras av cellen i två olika reaktioner, antingen genom fosforylering av deoxitymidin som beskrivs ovan eller genom metylering av deoxiuridinmonofosfat av enzymet tymidylatsyntas. Denna andra väg används av cellen under normala förhållanden, och har tillräcklig kapacitet för normal DNA-reparation. När en cell förbereder sig för delning krävs en helt ny uppsättning av DNA och kravet på byggstenar, inklusive deoxitymidintrifosfat, ökar. Celler förbereda sig för celldelning genom att syntetisera enzymer som krävs under celldelningen. De är nedreglerade utom vid celldelning och brytes därefter ned. Tymidinkinas 1 är ett sådan enzym, medan tymidinkinas 2 är cellcykeloberoende.
Användningar
Identifiering av celler i delning
Den första indirekta användningen av tymidinkinas inom biokemisk forskning var identifikation av delande celler genom inkorporering av radioaktivt märkt tymidin och mätning av radioaktivitet eller autoradiografi för att identifiera de celler som delar sig. För detta ändamål sätts tritierat tymidin till tillväxtmediet. Trots fel i tekniken användas den fortfarande för att bestämma tillväxthastigheten hos maligna celler och för att studera aktiveringen av lymfocyter i immunologi.
PET-scan av aktiva tumörer
3'-deoxi-3'-[(18)F]-fluortymidin är en tymidinanalog. Den tas upp i snabbt växande tumörvävnad. Fluorisotopen 18 är en positronstrålare som används i positronemissionstomografi (PET). Denna markör kan därför användas för PET-avbildning av aktiv tumörtillväxt och kan med fördel jämföras med den vanligare markören 2-[(18)F]-fluor-2-deoxi-D-glykos.
Val av hybridom
Hybridom är celler som erhålls genom fusion av tumörceller som delar sig oändligt och immunoglobulinproducerande lymfocyter (plasmaceller). Hybridom kan producera stora mängder immunglobuliner med unik specificitet (monoklonala antikroppar). Ett problem är att selektera ut hybridomen från den stora mängden ofusionerade celler. Ett vanligt sätt att lösa detta är att använda tymidinkinasnegativa tumörcellinjer för fusionen. Tymidinkinasnegativa celler erhålles genom att odla tumörceller i närvaro av tymidinanaloger och döda de tymidinkinaspositiva cellerna. De negativa cellerna kan sedan expanderas och användas för fusion med plasmaceller. Efter fusionen odlas cellerna i ett medium med metotrexat eller aminopterin som inhiberar enzymet dihydrofolatreduktas och därigenom blockerar de-novo-syntesen av tymidinmonofosfat. Ett sådant medium som vanligtvis används är HAT-medium, som innehåller hypoxantin, aminopterin och tymidin. De icke sammansmälta dör eftersom de inte har någon källa till tymidinmonofosfat. Lymfocyterna dör så småningom eftersom de inte är odödliga. Endast de hybridom som har “odödlighet” från sin cellinje och tymidinkinas från plasmacellen kan överleva. De som producerar den önskade antikroppen selekteras sedan ut och expanderas för att producera den monoklonala antikroppen. Hybridomceller kan också isoleras genom att använda samma princip som beskrivits med användning av en annan gen som syntetiserar inosinmonofosfat som krävs för syntes av guanosinmonofosfat för nukleotidsyntesen.
Klinisk kemi
Tymidinkinas 1 förekommer endast i samband med celldelning. Enzymet frisätts inte från celler under normal celldelning där cellerna bryter ned överflödiga proteiner intracellulärt. I normala individer är därför mängden av tymidinkinas i serum eller plasma mycket låg. Tumörceller frisätter enzym till cirkulationen, troligen från döda eller döende tumörceller. Tymidinkinasnivån i serum tjänar därför som ett mått av malign celldelning, indirekt som ett mått på aggressiviteten hos tumören. Det är intressant att notera att den form av enzymet som finns i cirkulationen inte svarar mot det protein som kodas av genen: genen producerar ett protein med molekylvikt omkring 25 kD. Det bildar en dimer med molekylvikt på cirka 50 kD, om det aktiveras av ATP bildas en tetramer med molekylvikt ca 100 kD. Huvudfraktionen av det aktiva enzymet i cirkulationen har en molekylvikt av 730 kD och är troligen bundet i ett komplex med andra proteiner.
De mest dramatiska ökningarna ses vid hematologiska maligniteter. Den huvudsakliga användningen av tymidinkinasanalys är vid Non-Hodgkins lymfom. Sjukdomen har ett brett spektrum av aggressivitet, från långsamt växande indolent sjukdom som knappast kräver behandling till mycket aggressiva snabbväxande former. Detta återspeglas i värdena på tymidinkinas i serum, som sträcker sig från nära det normala intervallet för långsamt växande tumörer till mycket höga nivåer för snabbt växande former.
Även hos hundar orsakar lymfom förhöjda TK nivåer i serum relaterade till sjukdomsaktiviteten och är användbart för uppföljning av sjukdomen.
Liknande mönster kan ses vid andra hematologiska maligniteter (leukemi, myelom, myelodysplastiskt syndrom). Ett mycket intressant fall är myelodysplastiskt syndrom: vissa går snabbt över till akut myeloisk leukemi, medan andra förblir indolenta under mycket lång tid. Identifiering av dem som snabbt går över till overt leukemi är viktigt för behandlingen.
Även solida tumörer ger ökade värden av tymidinkinas. Rapporter om detta har publicerats för prostatacancer, där tymidinkinas har föreslagits som ett komplement till PSA (prostataspecifikt antigen), den nu mest använda tumörmarkören vid prostatacancer. PSA anses ge en indikation av tumörmassan, tymidinkinas av tillväxthastigheten. Det finns också rapporter om nyttan av tymidinkinas mätningar i serum vid småcellig lungcancer, bröstcancer och njurcancer. Icke-maligna orsaker till förhöjning av tymidinkinas i serum är vitamin B12-brist vid perniciös anemi, virala infektioner (särskilt av virus ur herpesgruppen) och sårläkning efter trauma och operation.
Terapeutisk användning
Vissa läkemedel är specifikt riktade mot celler som delar sig. De kan användas mot tumörer och virussjukdomar (både mot retrovirus och mot andra virus) eftersom de sjuka cellerna delar sig mycket oftare än normala celler och även mot vissa icke-maligna sjukdomar relaterade till alltför snabb celldelning (t.ex. psoriasis). Det finns olika klasser av läkemedel för att kontrollera för snabb celldelning som är riktade mot tymidinmetabolismen:
Kedjebrytare (chain terminators) är tymidinanaloger som ingår i den växande DNA-kedjan, men modifierade så att kedjan inte kan förlängas vidare. Som analoger till tymidin fosforyleras de lätt till 5'- monofosfater. Monofosfaterna fosforyleras vidare till trifosfater och inkorporeras i den växande DNA-kedjan. Analogen har modifierats så att den inte har den hydroxylgrupp i 3'-positionen, som krävs för fortsatt kedjetillväxt. I zidovudin (AZT) har 3-hydroxylgruppen ersatts med en azidogrupp, i stavudin(ATC) har den har tagits bort utan ersättning. AZT användes som substrat i en av metoderna för bestämning av tymidinkinas i serum. Detta innebär att AZT kan störa denna metod och vara en begränsning: AZT är en standardkomponent i HAART-behandling vid HIV-infektion. En vanlig följd av AIDS är lymfom och den viktigaste diagnostiska användningen av tymidinkinasbestämning är för övervakning av lymfom.
Andra tymidinanaloger, till exempel Idoxuridin (ATC) verkar genom att blockera basparning under efterföljande replikeringscykler, vilket gör den resulterande DNA-kedjan defekt. Detta kan också kombineras med radioaktivitet för att uppnå apoptos i maligna celler.
Några antivirala läkemedel, som acyclovir (ATC) och ganciklovir (ATC) samt andra nyutvecklade nukleosidanaloger utnyttjar specificiteten hos viralt tymidinkinas. Dessa läkemedel fungerar som proläkemedel som i sig själva inte är toxiska men som omvandlas till giftiga droger genom fosforylering med viralt tymidinkinas. Celler infekterade med viruset producerar därför mycket giftiga trifosfater som leder till celldöd. Humant tymidinkinas med dess smalare specificitet, är oförmöget att fosforylera och aktivera proläkemedlet på detta sätt, endast celler som infekterats av viruset är känsliga för drogen. Sådana läkemedel är effektiva endast mot virus ur herpesgruppen med dess specifika tymidinkinas.
Sedan smittkopporna förklarats utrotade av WHO i december 1979 avslutades vaccinationsprogrammet. Om sjukdomen återuppstår, antingen genom olyckshändelse eller som en följd av biologisk krigföring, skulle den drabba en oskyddad befolkning och skulle kunna resultera i en svårkontrollerad epidemi. Massvaccination skulle vara oetiskt eftersom de enda effektiva vaccinerna mot smittkoppor använder attenuerade vacciniavirus med allvarliga biverkningar vid sällsynta tillfällen. Som en säkerhetsåtgärd hålls stora mängder vaccin i lager, men ett effektivt läkemedel mot smittkoppor har hög prioritet. En möjlig lösning skulle vara att använda specificiteten hos poxvirus tymidinkinas för ändamålet, på ett liknande sätt som det används för läkemedel mot herpesvirus. En svårighet är att poxvirus tymidinkinas tillhör samma familj av tymidinkinaser som de mänskliga tymidinkinaserna och därmed är mer lika kemiskt. Man söker därför efter antivirala läkemedel baserade på strukturen av poxvirus tymidinkinas. Sökandet har dock ännu inte lett till något användbart läkemedel.
Herpesvirus tymidinkinasgen har också använts som en "självmordsgen" för ett säkerhetssystem i genterapiexperiment. Den skulle göra det möjligt att avliva den använda cellinjen med gancyclovir om experimentet skulle ge upphov till oönskade eller farliga resultat om den rekombinanta genen skulle orsaka en mutation som leder till okontrollerad celltillväxt (insertionsmutationer). Tymidinkinas producerat av dessa modifierade celler kan sedan diffundera till angränsande celler, vilket gör också dem känsliga för ganciklovir, ett fenomen känt som "bystandereffekten". Detta tillvägagångssätt har använts för att behandla cancer i djurmodeller. Tumören kan avlivas om så få som 10 % av de maligna cellerna uttrycker genen.
En liknande användning av tymidinkinas utnyttjar närvaron i vissa tumörceller av ämnen som inte är närvarande i normala celler (tumörmarkörer). Sådana tumörmarkörer är t.ex. CEA och AFP. Generna för dessa tumörmarkörer kan användas som promotorgener för tymidinkinas. Tymidinkinas kan sedan aktiveras i celler som uttrycker tumörmarkör, men inte i normala celler, så att behandling med ganciklovir dödar endast tumörcellerna. Sådana genterapibaserade tekniker är fortfarande på experimentstadiet.
Införlivande av en tymidinanalog med bor har föreslagits och prövats i djurmodeller för borneutroninfångningsterapi av hjärntumörer.
Mätning
I serum
Nivån av tymidinkinas i serum eller plasma är så låg att mätningen bäst baseras på enzymaktiviteten. I kommersiella assayer görs detta genom inkubering av ett serumprov med en substratanalog. Den äldsta kommersiellt tillgänglig tekniken använder jod-deoxyuridine, där en metylgrupp i tymidin har ersatts med radioaktivt jod. Detta substrat accepteras väl av enzymet. Monofosfatet av joddeoxyuridin adsorberas på aluminiumoxid suspenderat i inkubationsmediet. Efter dekantering och tvättning ger radioaktiviteten hos aluminiumoxiden ett mått på mängden av tymidinkinas i provet. Reagenssatser baserade på denna princip är kommersiellt tillgängliga från Immunotech / Beckman och DiaSorin.
En icke-radioaktiv analysmetod har utvecklats av företaget Dia-Sorin. I denna teknik fosforyleras AZT till AZT-5'-monofosfat (AZTMP) genom TK1 i provet. AZTMP mäts i en ELISA med peroxidasmärkta antikroppar. Analysen körs i ett slutet system på en laboratorierobot från DiaSorin.
En annan teknik i mikrotiterplattor använder brom-deoxiuridin som substrat för enzymet. Produkten från reaktionen fosforyleras vidare till trifosfat och inkorporeras i DNA-strängar bundna till bottnen av brunnarna i plattan. De bestäms sedan med ELISA-teknik: Brunnarna fylls med en lösning av en monoklonal antikropp till brom-deoxiuridin konjugerad till alkaliskt fosfatas (tracern). Efter att obunden tracer har tvättats bort tillsätts en lösning av ett substrat till alkaliskt fosfatas, 4-nitrofenylfosfat. Produkten av reaktionen, 4-nitrofenol, är gul vid alkaliskt pH och mäts fotometriskt. Det är kommersiellt tillgängligt hos Biovica International.
Direkt bestämning av tymidinkinas-protein genom immunoanalys har också använts. Mängderna tymidinkinas vid bestämning med denna metod korrelerar inte väl med övriga metoder och har visat sig ha mindre klinisk signifikans och metoden har dragits tillbaka från marknaden.
I vävnad
Tymidinkinas har bestämts i vävnadsprov efter extraktion av vävnaden. Ingen standardmetod för preparation eller för analys har utvecklats och TK i extrakt från celler och vävnader har inte validerats för någon specifik frågeställning, se dock Romain et al. och Arnér et al. En metod har utvecklats för specifik bestämning av TK2 i cellextrakt med hjälp av substratanalogen 5-bromovinyl 2'-deoxiuridin. I de studier som redovisas är de metoder som använts så olika att jämförelser mellan olika studier är inte möjliga.
TK1 nivåerna i fostervävnad är högre än för motsvarande vävnader senare.
Vissa icke-maligna sjukdomar ger också upphov till dramatiska förhöjningar av TK värden i celler och vävnader, till exempel i perifera lymfocyter under monocytos och i benmärg vid perniciös anemi.
Det är rimligt att anta att TK-aktivitet i malign vävnad bör vara högre än i motsvarande normal vävnad. Detta bekräftas också i de flesta studier. En högre TK-aktivitet finns i neoplastisk än i normal vävnad i hjärntumörer, i hematologska maligniteter, i cancer och polyper i tjocktarmen, i bröstcancer, i lungcancer, i magcancer, i ovarialcancer, i mesoteliom, i melanom och i sköldkörteltumörer.
Terapi som påverkar graden av celltillväxt i leukemi och i bröstcancer ändrar också TK-värdena i motsvarande grad.
Immunhistokemisk färgning för tymidinkinas
Antikroppar mot tymidinkinas för immunhistokemi finns i handeln. Färgning för tymidinkinas är en tillförlitlig teknik för att identifiera patienter med stadium 2 bröstcancer. Det säkraste resultatet erhölls genom kombination av färgning av tymidinkinas och Ki-67. Tekniken har också validerats för lungcancer.
Mer att läsa
Tre översiktsartiklar om olika aspekter av tymidinkinas finns på webbplatsen för Biovica International


