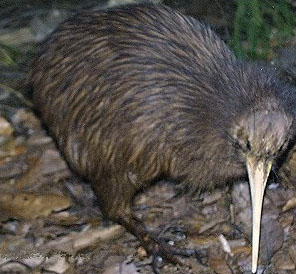
Ratitae () су полифилетска група која се састоји од свих птица унутар инфракласе Palaeognathae које немају кобилице и које су птице тркачице. Углавном су велике, дуговрате и дугоноге, изузетак је Apterygiformes, који је такође једина ноћна постојећа Ratitae.
Таксономија
Ratitae је формално описао енглески биолог Томас Хенри Хаксли, познат под надимку „Дарвинов булдог“ због свог заступања теорије еволуције Чарлса Дарвина, 1872- године.
Разумевање односа унутар кладе Palaeognathae је било у сталном променљивом стању. Раније су сви нелетећи чланови били сврстани у ред Struthioniformes, за који се у скорије време сматра да садржи само врсте из рода Struthio. Модерна инфракласа птица Palaeognathae састоји се од Ratitae и летећих неотропских птица из реда Tinamiformes, упоредиво са Neognathae. За разлику од других птица тркачица, Ratitae немају кобилицу на грудној кости и отуда и назив, од латинског „ratis“ „сплав“, то јест пловило које нема кобилицу, за разлику од постојећих птица летачица које су летеле и имале кобилицу. Без овог за учвршћивање мишића крила, не би могли да лете чак и да су развили одговарајућа крила.
Ratitae су полифилетска група, Tinamiformes спадају у њих и сестринска су група изумрлих Dinornithiformes. Ово имплицира да је нелетање особина која се развијала независно више пута у различитим лозама Ratitae.
Већина делова некадашњег суперконтинента Гондвана има Ratitae, или их је имала до релативно недавно. Тако је било и у Европи у палеоцену и еоцену, одакле су познати први Palaeognathae који су били птице тркачице. Struthioniformes су били присутни у Азији још у холоцену, иако се сматра да је род потекао из Африке. Међутим, ред Struthioniformes је можда еволуирао у Евроазији. Недавна студија претпоставља лауразијско порекло кладе. Гераноиди, који су можда били Ratitae, постојали су у Северној Америци.
Опис
Ratitae генерално имају много заједничких физичких карактеристика, иако многе нису заједничке реду Tinamiformes. Грудни мишићи су недовољно развијени. Немају довољно развијену грудну кост. Њихова Furcula је готово одсутна. Имају поједностављене скелете крила и мускулатуру. Ноге су им јаче и немају ваздушне коморе, осим бутних костију. Њихова репна и летна перја су застарела или су постала декоративно перје. Немају пернате лопатице, што значи да не морају да уље перје, па стога немају жлезде за чишћење. Немају раздвајање пернатих делова и непернатих делова и коначно, имају палеогнатна непца.
Struthioniformes имају највећи полни диморфизам. Rheiformes показују извесни дихроматизам током сезоне гнежђења. Dromaiidae, Casuariformes и Apterygiformes показују извесни полни диморфизам, претежно у величини.
Иако Ratitae деле много сличности, имају и велике разлике. Struthioniformes имају само два прста, при чему је један много већи од другог. Casuariformes су развили дугачке унутрашње нокте на ногама, које користе за одбрану. Struthioniformes и Rheiformes имају истакнута крила; иако их не користе за летење, користе их за удварање и одвраћање предатора.
Без изузетка, птићи ратита су способни да пливају, па чак и да роне.
На алометријској основи, Palaeognathae генерално имају мањи мозак од Neognathae. Apterygiformes су изузеци од овог тренда и поседују пропорционално већи мозак упоредив са мозгом папагаја и птица певачица, иако тренутно недостају докази за сличне напредне когнитивне способности.
Врсте
Живи облици
Афрички Struthioniformes су највеће живе Ratitae. Велики представник ове врсте може бити скоро 2,8 метара висок, тежак чак 156 кг и може бити бржи од коња.
Од живих врста, аустралијски ему (Dromaius novaehollandiae) је следећи по висини, достижући и до 1,9 метара и тежи око 50 кг. Као и Struthioniformes, Dromaiidae је брза, снажна птица отворених равница и шума.
Такође, у Аустралији и са острва на северу потичу три врсте из рода Casuarius. Краћи од Dromaiidae, али тежи и чврсто грађени, Casuariformes преферирају густо обраслу тропску шуму. Могу бити опасни када буду изненађени или сатерани у ћошак због својих оштрих канџи. У Новој Гвинеји, јаја Casuariformes се враћају у села, а птићи се узгајају за јело као веома цењени деликатес, упркос ризику који представљају по живот и тело. Достижу и до 1,8 метара висине и теже чак 85 кг.
Јужна Америка има две врсте из реда Rheiformes, великих брзих птица травнатих степа пампа. Већи велики нанду (Rhea americana) нарасте до око 1,4 метара и обично тежи 15 до 40 кг.
Најмање Ratitae су пет врста из реда Apterygiformes са Новог Зеланда. Apterygiformes су величине кокошке, стидљиви су и ноћни су животиње. Гнезде се у дубоким јазбинама и користе високо развијен њух да би пронашли мале инсекте и ларве у земљишту. Apterygiformes су познати по томе што полажу јаја која су веома велика у односу на величину свог тела. Јаје Apterygiformes може бити од 15 до 20 процената телесне масе женке Apterygiformes. Најмања врста Apterygiformes је мали пегави киви (Apteryx owenii), од 0,9-1,9 кг и 35-45 цм висине.
Изумрли облици холоцена
Најмање девет врста из реда Dinornithiformes живело је на Новом Зеланду пре доласка људи, од величине ћурке до врсте џиновске моа са јужног острва (Dinornis robustus), висине 3,7 метара и тежине око 230 кг. Изумрли су до 1400. године нове ере због лова од стране маорских досељеника, који су стигли око 1280. године нове ере.
Aepyornis maximus, „птица слон“ Мадагаскара, била је најтежа птица икада позната. Иако је била нижа од највише †Dinornithiformes, велика Aepyornis је могла тежити преко 400 кг и била је до 3 метара висока. Уз њу су биле још три врсте Aepyornis, као и три врсте мањег рода Mullerornis. Све ове врсте су опадале након доласка људи на Мадагаскар пре око 2.000 година и изумрле су до 17. или 18. века, ако не и раније.
Класификација

Постоје два таксономска приступа класификацији Ratitae. Први комбинује групе као породице у реду Struthioniformes, док други претпоставља да су се лозе развијале углавном независно и стога уздиже породице у ред Rheiformes, Casuariformes итд.
Еволуција
Дугогодишња прича о еволуцији Ratitae била је да деле заједничког претка из надреда Palaeognathae који је живео у Гондвани, чији су потомци изоловани једни од других померањем континената, који их је довео до њихових садашњих локација. Подржавајући ову идеју, неке студије засноване на морфологији, имунологији и секвенцирању ДНК показале су да су Ratitae монофилетски. Палеонтолог и орнитолог Џоел Кракрафт представио је хипотезу о биогеографској викаријантности 1974. године, која је сугерисала да су преци Palaeognathae преци Ratitae, били присутни и широко распрострањени у Гондвани током касне креде. Како се суперконтинент фрагментирао због тектонике плоча, они су ношени померањем плоча до њихових садашњих положаја и еволуирали су у врсте које су присутне данас. Најранији познати фосили Ratitae датирају из епохе палеоцена пре око 56 милиона година, као што је Diogenornis, могући рани рођак Rheiformes. Међутим, примитивнији Palaeognathae су познати још од пре неколико милиона година, а класификација и припадност самој породици Ratitae је неизвесна. Неки од најранијих Ratitae јављају се у Европи.
Недавне анализе генетских варијација између Ratitae не подржавају ову једноставну слику. Ratitae су се можда раздвојили једни од других прескоро да би делили заједничког гондванског претка. Такође, средњоеоценски Ratitae као што су Palaeotis и Remiornis из централне Европе могу имплицирати да је хипотеза о пореклу ван Гондване превише поједностављена.
Молекуларне филогеније Ratitae су генерално сместиле Struthioniformes у базалну позицију, а међу постојећим Ratitae, Rheiformes су сместиле на другу најбазалнију позицију, при чему су се аустрало-пацифички Ratitae поделили последњи. Такође су показали да су обе последње групе монофилетске. Ране митохондријалне генетске студије које нису успеле да учине Struthioniformes базалним, очигледно су биле угрожене комбинацијом брзог раног зрачења групе и дугих терминалних грана. Морфолошка анализа која је створила базалну новозеландску кладу није потврђена молекуларним студијама. Студија нуклеарних гена из 2008. године показује да се Struthioniformes прво гранају, затим Rheiformes и Tinamiformes, а затим се Apterygiformes одвајају од Dromaiidae и Casuariformes. У новијим студијама, показано је да су †Dinornithiformes и Tinamiformes сестринске групе, а Aepyornithiformes су најближи сродници новозеландског Apterygiformes. Додатна подршка за ову другу везу добијена је морфолошком анализом.
Откриће да се Tinamiformes гнезде унутар ове групе, првобитно засновано на двадесет нуклеарних гена и потврђено студијом која је користила четрдесет нових нуклеарних локуса чини Ratitae полифилетским, а не монофилетским, ако искључимо Tinamiformes. Пошто су Tinamiformes слаби летачи, ово покреће занимљива питања о еволуцији нелетања у овој групи. Гранање Tinamiformes унутар Ratitae сугерише да се нелетање развијало независно међу Ratitae најмање три пута. Новији докази сугеришу да се ово догодило најмање шест пута, или једном у свакој главној лози Ratitae. Рееволуција лета код Tinamiformes била би алтернативно објашњење, али такав развој је без преседана у историји птица, док је губитак лета уобичајен.
| Кладограм базиран на основу Кирен Џ. Мичел и сарадници (2014) и Такахиро Јонезава и сарадници (2016) | |||||||||||||||||||||||||||||||||||||||
|
До 2014. године, филогенија митохондријалне ДНК која укључује фосилне чланове сместила је Struthioniformes на базалну грану, затим Rheiformes, затим кладу која се састоји од моа и Tinamiformes, а затим последње две гране: кладу Dromaiidae плус Casuariformes и једну од Aepyornithiformes плус Apterygiformes.
Викаријантна специјација заснована на тектонском подели плоча Гондване праћеном померањем континената предвиђала би да би најдубља филогенетска подела била између афричких и свих осталих Ratitae, након чега би следила подела између јужноамеричких и аустрало-пацифичких Ratitae, отприлике као што је примећено. Међутим, однос између Aepyornithiformes и Apterygiformes изгледа захтева ширење преко океана летом, као што очигледно захтева колонизацију Новог Зеланда од стране Dinornis и могуће повратно ширење Tinamiformes у Јужну Америку, ако се ово друго догодило.Филогенија у целини сугерише не само вишеструко независно порекло нелетања, већ и гигантизма, најмање пет пута. Гигантизам код птица има тенденцију да буде острвски. Међутим, десет милиона година дуг прозор могућности за еволуцију птичјег гигантизма на континентима могао је постојати након изумирања нептичјих диносауруса, у којима су Ratitae могли да попуне празне биљоједе нише пре него што су сисари достигли довољну величину. Неки стручњаци су, међутим, били скептични према новим налазима и закључцима.
Apterygiformes и Tinamiformes су једине Palaeognathae лозе које нису развиле гигантизам, можда због конкурентског искључивања од стране џиновских Ratitae који су већ били присутни на Новом Зеланду и Јужној Америци када су стигли или се појавили. Чињеница да је Нови Зеланд био једина копнена маса која је недавно подржала две главне лозе које не лете Ratitae може одражавати готово потпуно одсуство аутохтоних сисара, што је омогућило Apterygiformes да заузме ноћну нишу сличну сисарима. Међутим, разне друге копнене масе попут Јужне Америке и Европе подржале су вишеструке лозе Ratitae које су еволуирале независно, поткопавајући ову хипотезу о конкурентском искључивању.
Најновије студије о генетској и морфолошкој дивергенцији и дистрибуцији фосила показују да Palaeognathae у целини вероватно потичу са северне хемисфере. Ранокенозојски Palaeognathae северне хемисфере, као што су Lithornis, Pseudocrypturus, Paracathartes и Palaeotis, изгледа да су најбазалнији чланови кладе. Различите лозе Ratitae вероватно потичу од летећих предака који су независно колонизовали Јужну Америку и Африку са севера, вероватно првобитно у Јужној Америци. Из Јужне Америке, могли су путовати копном до Аустралије преко Антарктика, истом рутом којом се сматра да су торбари стигли до Аустралије, а затим стигли до Новог Зеланда и Мадагаскара путем расејања, ретких метода расејавања са малом вероватноћом, као што је сплаварење на велике удаљености преко океана. Гигантизам би еволуирао након трансокеанских расејања.
Гнежђење
Ratitae се разликују од птица летачица по томе што су морале да се прилагоде или развију одређене карактеристике како би заштитиле своје младунце. Прво и најважније је дебљина љуске њихових јаја. Њихови младунци се излежу развијенији од већине и убрзо након тога могу да трче или ходају. Такође, већина Ratitae има заједничка гнезда, где деле дужности инкубације са другима. Struthioniformes и велики пегави киви (Apteryx maxima) су једини Ratitae код којих женка инкубира. Они деле дужности са мужјацима који инкубирају ноћу. Casuariformes и Dromaiidae су полиандрични, при чему мужјаци инкубирају јаја и одгајају птиће без очигледног доприноса женки. Struthioniformes и Rheiformes су полигини, при чему се сваки мужјак удвара вељем броју женки. Мужјаци Rheiformes су одговорни за изградњу гнезда и инкубацију, док мужјаци Struthioniformes инкубирају само ноћу. Apterygiformes се истичу као изузетак са продуженим моногамним репродуктивним стратегијама где или мужјак сам или оба пола инкубирају једно јаје. За разлику од већине птица, мужјаци Ratitae имају фалус који се убацује у клоаку женке током парења.
Исхрана
Птићи Ratitae имају тенденцију да буду више сваштоједи или инсектоједи. Сличности код одраслих се завршавају исхраном, јер се сви разликују у исхрани и дужини дигестивног тракта, што је показатељ исхране. Struthioniformes, са најдужим трактом од 14 метара, су првенствено биљоједи. Rheiformes путеви су следећи по дужини, 8-9 метара, а имају и слепо црево. Такође су углавном биљоједи, концентришући се на биљке широког лишћа. Међутим, јешће инсекте ако се укаже прилика. Dromaiidae имају трактове од 7 метара дужине, и имају имају тенденцију да буду више сваштоједи или инсектоједи, укључујући и друге мале животиње. Casuariformes имају скоро најкраће трактове од 4 метара. Коначно, Apterygiformes имају најкраће трактове и једу глисте, инсекте и друга слична створења. Dinornithiformes и Aepyornithiformes били су највећи аутохтони биљоједи у својим фаунама, далеко већи од савремених биљоједних сисара у овом другом случају.
Неки изумрли Ratitae су можда имали необичнији начин живота, као што су ускокљуни Diogenornis и Palaeotis, у поређењу са Lithornithidae сличним обалним птицама, и могло би указивати на сличну исхрану засновану на животињама.
Губитак лета
Губитак лета омогућава птицама да елиминишу трошкове одржавања разних адаптација које омогућавају лет, као што су велика маса грудних мишића, шупље кости и лака грађа. Базална стопа метаболизма код врста које лете је много већа него код копнених птица које не лете. Али енергетска ефикасност може помоћи у објашњењу губитка лета само када користи од летења нису кључне за преживљавање.
Истраживања о птицама које су престале да лете указују на то да се стање без лета развило у одсуству предатора. Ово показује да је лет генерално неопходан за преживљавање и расељавање код птица. У очигледној супротности са овим, многе копнене масе које насељавају Ratitae такође су насељене предаторским сисарима. Међутим, изумирање K-Pg створило је временски прозор са одсуством великих предатора, што је можда омогућило прецима постојећих Ratitae да еволуирају у стање без лета. Они су потом подвргнути селекцији због своје величине. Једна хипотеза сугерише да се, како се притисак предатора смањује на острвима са ниским богатством врста грабљивица и без предатора сисара, смањује потреба за великим, снажним мишићима за лет који омогућавају брзо бекство. Штавише, врсте грабљивица имају тенденцију да постану генералистички предатори на острвима са ниским богатством врста, уместо да се специјализују за предаторство птица. Повећање величине ногу компензује смањење дужине крила код острвских птица које нису изгубиле лет обезбеђивањем дуже полуге за повећање силе генерисане током потиска који покреће полетање.
Ratitae и људи
Ratitae и људи имају дуг однос, почевши од употребе јаја за посуде за воду, накит или друге уметничке медије. Перје мужјака Struthioniformes било је популарно за шешире током 18. века, што је довело до лова и наглог смањења популација. Узгој Struthioniformes је проистекао из ове потребе, а људи су сакупљали перје, кожу, јаја и месо од Struthioniformes. Узгој Dromaiidae је такође постао популаран из сличних разлога, као и због њиховог уља. Перје Rheiformes је популарно за крпе за прашину, а јаја и месо се користе за храну за пилиће и кућне љубимце у Јужној Америци. Кожа Ratitae су популарне за кожне производе попут ципела.
Прописи Сједињених Америчких Држава
Служба за безбедност и инспекцију хране (FSIS) Министарства пољопривреде САД покренула је 1995. године добровољни програм инспекције Ratitae, уз накнаду за услугу, како би помогла индустрији у развоју да побољша тржишну доступност меса. Одредба у закону о апропријацијама Министарства пољопривреде САД за фискалну 2001. годину (PL 106–387) изменила је Закон о инспекцији производа од живине како би се федерална инспекција меса ратита учинила обавезном од априла 2001. године (21 USC 451 et seq.).
Галерија живих врста