
Abiogênese, origem da vida ou biopoese é o processo natural pelo qual a vida surgiu a partir de matéria não viva. Na ciência, isso não significa o aparecimento repentino de um organismo completo, mas uma transição gradual entre a química de uma Terra sem vida e os primeiros sistemas capazes de manter sua organização, reproduzir-se e evoluir. Não existe uma sequência única aceita para essa transição, e nenhuma experiência conseguiu reproduzi-la por inteiro.
Para explicar como a vida começou, é preciso entender como moléculas relativamente simples passaram a formar sistemas nos quais funções que nas células trabalham juntas ainda estavam surgindo. Entre elas estão armazenar e transmitir informação, acelerar reações químicas, obter energia do ambiente e manter componentes reunidos dentro de algum tipo de compartimento. A pesquisa sobre abiogênese reúne química, biologia, geologia, física, astronomia e astrobiologia para investigar como essas capacidades poderiam ter aparecido e se combinado.
Experimentos mostram que componentes ligados à vida podem se formar sem participação de organismos, e moléculas orgânicas também foram encontradas em meteoritos, cometas e asteroides. A partir dessas possibilidades, diferentes hipóteses procuram explicar etapas posteriores. Algumas dão maior atenção a moléculas capazes de guardar informação e participar de sua própria replicação, como na hipótese do mundo do RNA. Outras investigam redes químicas semelhantes a um metabolismo primitivo, a formação de compartimentos semelhantes a membranas ou a combinação gradual desses processos. Também são estudados ambientes muito diferentes para essas etapas, como fontes hidrotermais, corpos de água na superfície, regiões geladas e fissuras no interior da crosta terrestre. Essas propostas podem corresponder a alternativas ou a partes diferentes de uma mesma sequência.
O registro geológico mostra que a vida já existia muito cedo na história da Terra, mas preserva pouco do intervalo em que ela surgiu. O último ancestral comum universal, ou LUCA, viveu depois dessa transição e já possuía uma organização celular desenvolvida, por isso não deve ser confundido com a primeira forma de vida. Comparar organismos, reconstruir características do LUCA, examinar as rochas mais antigas e testar química prebiótica em laboratório permite investigar etapas que não deixaram um registro direto. A Terra permanece o único lugar onde a existência de vida foi confirmada, e compreender como ela começou também orienta a procura por vida em outros mundos.
Visão geral


Entre as propriedades usadas para definir a vida estão hereditariedade, variação e capacidade de evolução, e a NASA adota como definição de trabalho "um sistema químico autossustentável capaz de evolução darwiniana". Nas células existentes, replicação, tradução, catálise e produção de energia dependem umas das outras, e as reconstruções do LUCA são compatíveis com uma organização celular de complexidade comparável à dos procariotos. Para explicar a origem da vida, é preciso entender como essas funções surgiram e passaram a trabalhar em conjunto antes de existir uma célula com toda essa maquinaria.
As pesquisas procuram explicar como replicação, catálise, compartimentalização e aproveitamento de energia puderam se combinar aos poucos, sem supor que todos os mecanismos das células recentes já existissem desde o início. Etapas anteriores podem ter incluído autorreplicação molecular, formação espontânea de membranas e catálise por RNA. Ainda não foi reproduzida em laboratório uma transição completa entre química prebiótica e vida celular.
As condições anteriores a uma célula comparável ao LUCA só podem ser reconstruídas em linhas gerais. Um planeta habitável precisa oferecer água líquida, materiais químicos disponíveis e fontes de energia livre, como luz solar e calor geotérmico. Experimentos de síntese prebiótica conseguem produzir compostos orgânicos simples e, em certas condições, oligômeros como peptídeos e cadeias de RNA. A evolução depois do LUCA é mais bem compreendida porque deixou descendentes e sinais biológicos que podem ser comparados. Já a passagem de componentes simples para um sistema com organização semelhante à do LUCA ainda está longe de ser esclarecida.
A astrobiologia procura sinais de vida fora da Terra, que permanece o único lugar onde sua existência foi confirmada. Entre os problemas estudados estão as interações químicas, as estruturas intermediárias, as fontes de energia e as condições ambientais que poderiam permitir o surgimento de sistemas macromoleculares capazes de evoluir. Outro problema é a diversidade química dos possíveis polímeros que armazenavam informação antes das moléculas usadas pelas células recentes. Esses polímeros provavelmente surgiram durante a evolução química prebiótica, e seus componentes poderiam vir de moléculas orgânicas simples, como bases nitrogenadas, aminoácidos e açúcares, formadas por rotas terrestres ou extraterrestres.
Plausibilidade prebiótica e limites experimentais
Quando uma reação funciona em laboratório, isso mostra que a transformação química é possível nas condições testadas, mas não prova que ela tenha acontecido na Terra primitiva. Para avaliar se uma rota é plausível, também é preciso saber se os reagentes poderiam estar disponíveis e concentrados, quais fontes de energia existiam, quais eram o pH, a temperatura e o estado de oxirredução, que minerais e catalisadores estavam presentes e que reações concorrentes poderiam ocorrer. As etapas sucessivas também precisam funcionar sem depender de reagentes purificados ou de mudanças ambientais para as quais não exista um mecanismo físico plausível.
Como o registro geológico do Hadeano é incompleto e a Terra primitiva tinha ambientes muito diferentes entre si, uma condição adequada a determinada reação não precisa ter existido no planeta inteiro nem durante todo o período. Um experimento se torna mais útil como modelo de abiogênese quando suas condições podem ser relacionadas a dados geológicos independentes e quando deixa claro o que ainda falta estabelecer entre o produto obtido no laboratório e um sistema capaz de evoluir.
História da pesquisa



Muito antes da ciência moderna, já existiam tentativas de explicar o aparecimento dos seres vivos por causas naturais. Na Grécia antiga, Anaximandro relacionou o surgimento dos primeiros animais a um ambiente aquoso, enquanto Anaxágoras imaginou sementes da vida espalhadas pelo cosmos, uma ideia distante do que mais tarde seria chamado de panspermia. Essas propostas eram muito diferentes da abiogênese estudada pela ciência recente, mas já buscavam causas naturais para a origem da vida.
Geração espontânea: de Aristóteles a Pasteur
Na biologia de Aristóteles, a geração espontânea explicava o aparecimento de certos organismos a partir de matéria não viva ou em decomposição. A ideia continuou em circulação por muitos séculos, embora seus defensores discordassem sobre como esse processo ocorreria. A partir do século XVII, observações microscópicas e experiências controladas começaram a limitar esse tipo de explicação. Robert Hooke publicou em 1665, em Micrographia, a primeira representação impressa conhecida de um microrganismo, o microfungo Mucor. Em 1668, Francesco Redi mostrou que larvas de moscas não surgiam na carne quando os insetos eram impedidos de depositar ovos nela. A partir da década de 1670, Antonie van Leeuwenhoek observou protozoários e bactérias, levando a discussão também para organismos invisíveis a olho nu.
No século XVIII, John Needham aqueceu caldos nutritivos, fechou os recipientes e interpretou o crescimento posterior de microrganismos como geração espontânea. Lazzaro Spallanzani repetiu os testes com aquecimento mais prolongado e vedação mais cuidadosa e concluiu que os resultados de Needham vinham de contaminação. A controvérsia continuou porque os críticos podiam argumentar que o excesso de aquecimento ou a falta de contato com o ar impedia a suposta geração da vida.
Enquanto esse debate seguia, a química orgânica enfraquecia a ideia de que a matéria dos organismos obedecia a princípios completamente separados do restante da química. Em 1828, Friedrich Wöhler obteve ureia pelo rearranjo de cianato de amônio. O episódio foi apresentado mais tarde como se tivesse encerrado de imediato o vitalismo, mas os químicos continuaram a discutir forças vitais durante décadas. Nas décadas seguintes, outros compostos encontrados nos seres vivos também foram produzidos em laboratório, entre eles a alanina preparada por Adolph Strecker e os açúcares formados a partir de formaldeído nos trabalhos de Aleksandr Butlerov.
Entre 1859 e 1862, Louis Pasteur colocou caldos nutritivos em frascos de pescoço de cisne. O ar entrava nos recipientes, mas a poeira e os microrganismos ficavam retidos no pescoço. O caldo permanecia estéril enquanto não tocava esse material e apresentava crescimento quando a barreira era rompida ou o líquido alcançava a poeira acumulada. Junto com os trabalhos de Redi, Spallanzani e outros pesquisadores, esses resultados afastaram a geração espontânea como explicação para o aparecimento de organismos nas condições comuns testadas em laboratório. Eles não testavam, porém, se a primeira vida poderia ter surgido por processos químicos nas condições muito diferentes da Terra primitiva.
De Pasteur a Oparin e Haldane
A publicação de A Origem das Espécies em 1859 deu novo peso à pergunta sobre o aparecimento do primeiro ancestral de todos os organismos. Thomas Henry Huxley chamou em 1870 de "biogênese" a produção de vida a partir de vida preexistente e de "abiogênese" a hipótese oposta. Para Huxley, os experimentos disponíveis apoiavam a biogênese nas condições observadas, mas não provavam que a abiogênese jamais pudesse ter ocorrido no passado remoto.
Em 1º de fevereiro de 1871, Charles Darwin escreveu a Joseph Dalton Hooker imaginando que uma etapa inicial pudesse ocorrer em uma "pequena lagoa morna", com sais de amônia e fósforo, luz, calor e eletricidade, onde compostos mais complexos poderiam se formar. Ele observou que substâncias desse tipo seriam consumidas rapidamente por organismos já existentes, enquanto antes do aparecimento da vida poderiam permanecer disponíveis para outras transformações. A carta não oferecia um mecanismo completo, mas distinguia a origem inicial da vida da geração espontânea de organismos em um mundo que já estava habitado.
No mesmo período, alguns pesquisadores consideraram que a vida poderia ter vindo do espaço. Hermann von Helmholtz discutiu a possibilidade de microrganismos chegarem à Terra em meteoritos, e William Thomson, Lord Kelvin, apresentou uma ideia semelhante em 1871. Essas propostas deram forma moderna à panspermia, cuja origem mais antiga costuma ser relacionada a Anaxágoras. A panspermia trata do transporte de vida entre corpos celestes. Sozinha, ela apenas desloca para outro lugar a pergunta sobre como a primeira vida surgiu.
Nas últimas décadas do século XIX e no começo do XX, compostos orgânicos ligados à biologia começaram a ser produzidos por rotas cada vez mais diferentes. Descargas elétricas, radiação ultravioleta e reagentes simples geraram açúcares, ácidos graxos e aminoácidos. Em geral, esses trabalhos tentavam entender síntese orgânica, assimilação de carbono ou processos vegetais, e ainda não tinham como objetivo reproduzir a Terra primitiva. Ao mesmo tempo, a ideia de protoplasma como base físico-química da célula aproximava o estudo da vida da química e da física.
Entre 1914 e 1917, Leonard Troland propôs que uma entidade primordial poderia ter sido uma enzima capaz de se autorreplicar, chamada por ele de "enzima genética". Hermann Joseph Muller retomou a ideia na década de 1920 e colocou um gene, ou um pequeno conjunto de genes, no começo da evolução, com capacidade de replicação, mutação e catálise. Essas propostas anteciparam modelos posteriores em que a hereditariedade molecular vem antes de uma célula completa, numa época em que a natureza química dos genes ainda não era conhecida.
Em 1924, Aleksandr Oparin propôs que a vida tivesse sido precedida por um longo período de síntese abiótica e acúmulo de compostos orgânicos, seguido pela formação gradual de sistemas cada vez mais organizados. Na versão ampliada da década de 1930, sua hipótese incluía uma atmosfera redutora e coacervados como modelos de sistemas pré-celulares formados por muitas moléculas. Em 1929, J. B. S. Haldane chegou de forma independente a uma ideia de evolução química. Em uma Terra sem grande quantidade de oxigênio livre, a energia solar poderia favorecer a produção de compostos orgânicos que se acumulariam nos oceanos, formando sua "sopa quente e diluída". Haldane também considerou vírus como possíveis formas intermediárias anteriores às primeiras células. Essas ideias ficaram conhecidas em conjunto como hipótese de Oparin e Haldane.
J. D. Bernal direcionou a discussão para problemas físicos de concentração, superfícies minerais e organização molecular. Em 1949 e em trabalhos posteriores, apresentou a origem da vida como uma sequência que incluía a produção de monômeros, sua polimerização e a organização de sistemas celulares.
Início da química prebiótica
Experimentos planejados especificamente para testar condições da Terra primitiva começaram a ganhar forma no início da década de 1950. Em 1951, o grupo de Melvin Calvin irradiou soluções aquosas de dióxido de carbono e obteve principalmente ácido fórmico, num dos primeiros testes de síntese orgânica com uma fonte de alta energia. Harold Urey, que estudava a química inicial do Sistema Solar, propôs em 1952 que a atmosfera terrestre primitiva poderia ter sido fortemente redutora e favorável à formação de compostos orgânicos.
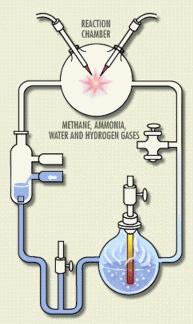
Stanley Miller, então estudante de pós-graduação de Urey na Universidade de Chicago, começou no fim de 1952 a testar essa hipótese. Seu aparelho fazia vapor de água circular por uma mistura de metano, amônia e hidrogênio submetida a descargas elétricas. Depois de alguns dias, a água continha compostos orgânicos, entre eles os aminoácidos glicina e alanina. A alanina produzida era racêmica, o que ajudava a descartar contaminação biológica como origem do produto. A experiência transformou a síntese prebiótica em um campo no qual condições propostas para a Terra primitiva podiam ser reproduzidas e comparadas em laboratório.
Miller testou depois outras misturas gasosas e outros aparelhos, e amostras preservadas desses experimentos foram reexaminadas décadas mais tarde com técnicas que detectavam compostos invisíveis aos métodos da década de 1950. O aparelho que simulava uma pluma vulcânica havia produzido uma diversidade de aminoácidos maior que a encontrada no ensaio clássico, e amostras de outro experimento, que usava sulfeto de hidrogênio, continham 23 aminoácidos e quatro aminas.
Com a mudança na interpretação geológica da Terra primitiva, a atmosfera deixou de ser tratada como se tivesse permanecido fortemente redutora durante todo o período. Modelos e dados geoquímicos permitem uma atmosfera global menos redutora, com episódios ou ambientes locais nos quais gases reduzidos poderiam se acumular, por exemplo depois de grandes impactos ou perto de sistemas vulcânicos. Por isso, o aparelho de Miller não deve ser visto como uma reprodução de uma única atmosfera global, embora continue útil para testar a síntese orgânica em ambientes reduzidos plausíveis.
Síntese prebiótica e biologia molecular
A experiência de Miller e a apresentação do modelo de dupla hélice do DNA por James Watson e Francis Crick ocorreram com menos de três semanas de diferença em 1953. A química prebiótica passou a avançar ao lado de uma biologia molecular que começava a explicar a hereditariedade e a produção de proteínas por meio de ácidos nucleicos e outras macromoléculas.
Os primeiros experimentos não ficaram restritos aos ácidos nucleicos e, em 1958, Sidney W. Fox e Kaoru Harada aqueceram misturas de aminoácidos e obtiveram copolímeros térmicos chamados proteinoides. No ano seguinte, Fox, Harada e John Kendrick observaram que soluções quentes desses polímeros formavam microesferas ao esfriar. Essas microesferas não eram células, mas permitiam estudar como polímeros poderiam formar estruturas delimitadas sem maquinaria biológica.
Entre 1959 e 1961, Joan Oró mostrou que moléculas ligadas aos ácidos nucleicos também podiam surgir por química abiótica. A adenina foi produzida a partir de cianeto de hidrogênio em solução aquosa com amônia, e outros experimentos examinaram purinas e aminoácidos. A síntese prebiótica começava assim a alcançar moléculas que a biologia molecular colocava no centro da hereditariedade.
Na década de 1960, continuou o contraste entre modelos centrados em moléculas genéticas e propostas baseadas em sistemas com muitos componentes. Muller considerava que replicação, mutação e catálise poderiam definir uma entidade genética primordial. Oparin defendia uma organização integrada com metabolismo e compartimentalização, e mais tarde incorporou ácidos nucleicos a seus modelos pré-celulares. Nenhuma sequência única saiu desse debate. Em vez disso, ele abriu caminhos para hipóteses desenvolvidas depois sobre mundo do RNA, protometabolismo, membranas primitivas e protocélulas.
Terra primitiva e limites cronológicos


←Início do Universo
←Primeiras estrelas
←Galáxia mais antiga
←Espirais da Via Láctea
←Terra / Sistema Solar
←LUCA
←Fósseis mais antigos
←Primeiro oxigênio
←Oxigênio atmosférico
←Reprodução sexuada
←Explosão Cambriana
Formação do Sistema Solar e da Terra
Pela hipótese nebular, o Sistema Solar começou a se formar há cerca de 4,6 bilhões de anos, quando uma região de uma nuvem molecular entrou em colapso. A maior parte da massa se concentrou no centro e formou o Sol. O material restante ficou em um disco protoplanetário de gás e poeira, no qual se formaram planetesimais e planetas.
A idade da Terra é de aproximadamente 4,54 bilhões de anos, calculada por datação radiométrica de materiais antigos do Sistema Solar. Como restam poucas rochas do Hadeano, a composição da atmosfera, a extensão dos oceanos e a quantidade de crosta exposta precisam ser reconstruídas a partir de minerais antigos, dados geoquímicos e modelos planetários.
A época do impacto que formou a Lua ainda é discutida. As idades lunares concentradas em torno de 4,35 bilhões de anos podem registrar uma fusão parcial posterior causada por aquecimento de maré, enquanto a formação da Lua teria ocorrido antes, entre cerca de 4,43 e 4,53 bilhões de anos. O impacto gigante ligado à formação lunar teria alterado profundamente a superfície e a atmosfera da Terra. A atmosfera e a hidrosfera do Hadeano também mudaram à medida que voláteis eram incorporados ao planeta ou liberados pelo oceano de magma e pelo manto. A composição dos gases dependia do estado de oxirredução do interior terrestre, da pressão, do vulcanismo, da perda de gases para o espaço e de impactos. Água líquida pode ter começado a se acumular por volta de 4,4 bilhões de anos, embora episódios posteriores de acreção provavelmente tenham vaporizado parte dos oceanos por algum tempo. O pH dos oceanos hadeanos não é conhecido diretamente. Para o começo do Arqueano, há estimativas em torno de 6,5 a 7,0, valores inferiores aos de grande parte do Fanerozoico.
Água líquida já existia na superfície ou perto dela muito cedo. Cristais de zircão com cerca de 4,4 bilhões de anos preservam sinais isotópicos compatíveis com contato entre a crosta e água líquida. Zircões de Jack Hills, na Austrália Ocidental, também guardam sinais de contato entre água de origem atmosférica e crosta emersa há cerca de 4,0 a 3,9 bilhões de anos. Isso é compatível com um ciclo hidrológico que já incluía precipitação e água doce.
Não se sabe quanto da superfície terrestre ficava acima do nível do mar no Hadeano. Modelos que combinam o crescimento dos continentes com mudanças no volume dos oceanos permitem que 20% ou mais da superfície estivesse emersa no Hadeano médio. No Hadeano tardio e no começo do Arqueano, porém, a terra exposta pode ter se limitado a ilhas oceânicas. Essa diferença muda a plausibilidade de modelos que dependem de lagos, margens continentais ou ciclos de umedecimento e secagem.
O chamado bombardeio intenso tardio foi proposto para explicar a concentração aparente de algumas idades lunares em torno de 3,9 bilhões de anos. Ainda não há consenso sobre a existência de um episódio catastrófico concentrado entre 3,85 e 3,9 bilhões de anos, porque a amostragem lunar pode estar enviesada e nenhum registro terrestre equivalente foi confirmado. Mesmo um bombardeio intenso não precisaria ter esterilizado o planeta inteiro, pois partes do oceano e ambientes subterrâneos poderiam continuar habitáveis.
Primeiras evidências de vida
O registro geológico não fornece uma única data para o surgimento da vida. Sinais propostos em rochas de 3,8 a 3,7 bilhões de anos continuam discutidos, enquanto vestígios próximos de 3,5 bilhões de anos são mais abundantes e aceitos com maior segurança. No Cinturão de rochas verdes de Nuvvuagittuq, no norte do Quebec, estruturas interpretadas como microbialitos foram propostas como vestígios de vida em precipitados hidrotermais com pelo menos 3,77 bilhões e talvez mais de 4 bilhões de anos. A origem biológica dessas estruturas é contestada porque processos sem vida, entre eles auto-organização mineral em águas ricas em sílica, jardins químicos, circulação hidrotermal e material vulcânico, podem produzir formas parecidas. As rochas do cinturão incluem intrusões máficas com cerca de 4,2 bilhões de anos, o que confirma a preservação de material hadeano, mas não resolve se as estruturas foram formadas por organismos.
Na região de Pilbara, estruturas microscópicas tubulares em arenito com pirita foram interpretadas como fósseis de microrganismos que metabolizavam enxofre. Em rochas de 3,8 a 3,7 bilhões de anos, outros possíveis biossinais incluem grafite com composição isotópica leve e certas estruturas sedimentares. Essas evidências mais antigas são menos seguras que os microfósseis e biossinais de aproximadamente 3,5 bilhões de anos.
O LUCA foi estimado em aproximadamente 4,2 bilhões de anos, com intervalo de 4,09 a 4,33 bilhões, a partir de duplicações gênicas anteriores a ele calibradas com fósseis microbianos. Essa idade o coloca mais perto do surgimento da vida do que em muitas reconstruções anteriores. Como outras datas calculadas por relógio molecular para acontecimentos tão antigos, o intervalo depende dos modelos filogenéticos, das calibrações fósseis e das premissas adotadas. A precisão dos números não significa que a idade seja conhecida com a mesma precisão.
Na Formação Dresser, em Pilbara, rochas de cerca de 3,48 bilhões de anos contêm estruturas laminadas interpretadas como estromatólitos. Pirita nanoporosa e matéria orgânica preservadas em parte delas também foram interpretadas como biossinais antigos. Partes da formação preservam depósitos de fontes termais terrestres com estromatólitos e outros biossinais. Outra análise por relógio molecular também colocou o LUCA antes de 3,9 bilhões de anos atrás.
Matérias-primas da química prebiótica


A maior parte dos elementos mais pesados que o hélio foi formada por nucleossíntese estelar e por processos ligados à evolução e à morte das estrelas. À medida que esse material se acumulou no meio interestelar, carbono, nitrogênio, oxigênio, fósforo, enxofre e metais passaram a fazer parte da matéria disponível para novos sistemas planetários. Moléculas orgânicas também se formam naturalmente no espaço, em nuvens moleculares, gelos, discos protoplanetários e corpos menores. Na Terra primitiva, compostos orgânicos podem ter sido produzidos no próprio planeta por reações atmosféricas, hidrotermais ou ligadas a impactos e também ter chegado do espaço em meteoritos, cometas e poeira interplanetária.
Origem cósmica dos elementos
Depois da nucleossíntese primordial, a matéria bariônica do Universo era formada principalmente por hidrogênio e hélio, com quantidades muito menores de deutério, hélio-3 e lítio-7. As primeiras estrelas nasceram de gás quase sem elementos mais pesados que o hélio. Muitas podem ter sido muito massivas, embora a distribuição de suas massas não seja conhecida com precisão. A nucleossíntese estelar produz núcleos até a região do ferro, e processos de captura de nêutrons em diferentes ambientes estelares formam a maior parte dos elementos mais pesados que o ferro.
O carbono é produzido por nucleossíntese estelar durante a fusão de hélio nas estrelas. Em estrelas de baixa e média massa, parte dele chega às camadas externas durante a fase de ramo gigante assimptótico e é lançada ao espaço por ventos estelares. O material ejetado mistura-se ao meio interestelar e depois pode entrar em novas nuvens moleculares e discos, dos quais surgem outras estrelas e sistemas planetários.
Compostos orgânicos extraterrestres
Fora da Terra, compostos orgânicos podem se formar por reações em fase gasosa, nas superfícies de grãos de poeira e em gelos submetidos à radiação. Meteoritos e amostras trazidas diretamente por missões espaciais permitem estudar essa química com menor risco de confundi-la com contaminação adquirida depois da chegada à Terra.
Meteoritos carbonáceos contêm aminoácidos de origem extraterrestre, bases nitrogenadas e açúcares ligados à química prebiótica. Amostras pristinas do asteroide Bennu, trazidas pela missão OSIRIS-REx, continham 14 dos 20 aminoácidos usados nas proteínas terrestres, as cinco bases canônicas de DNA e RNA e milhares de outros compostos nitrogenados. A glicina presente em material do cometa Wild 2, trazido pela missão Stardust, tinha composição isotópica compatível com origem extraterrestre. Esses achados mostram que corpos do Sistema Solar podem transportar matéria-prima útil à química prebiótica, mas não provam que esse material tenha sido necessário para a origem da vida na Terra. Partículas muito menores também chegam continuamente ao planeta, e o fluxo recente de poeira extraterrestre é estimado em cerca de 5.200 toneladas por ano, com incerteza de aproximadamente 1.200 a 1.500 toneladas.
Hidrocarbonetos aromáticos policíclicos
Os Hidrocarbonetos aromáticos policíclicos (HAPs) são moléculas aromáticas abundantes no meio interestelar e ajudam a explicar bandas de emissão observadas no infravermelho. A espectroscopia rotacional de alta resolução também permitiu reconhecer diretamente moléculas aromáticas específicas, inclusive derivados cianados policíclicos, em nuvens moleculares como TMC-1. HAPs foram encontrados também nas amostras de Bennu. Sua presença mostra que moléculas aromáticas complexas podem existir antes da vida, mas não prova que os HAPs tenham participado diretamente da origem da vida terrestre.
Em experimentos que imitam gelos encontrados no espaço, a radiação e outras reações químicas transformam HAPs em derivados oxigenados e hidrogenados mais complexos. Isso mostra que essas transformações são quimicamente possíveis em ambientes espaciais, sem mostrar que seus produtos tenham sido incorporados aos primeiros sistemas vivos.
Bases nitrogenadas, açúcares e outros precursores
Meteoritos carbonáceos contêm bases nitrogenadas de origem extraterrestre, entre elas uracila e purinas. A composição isotópica dessas moléculas e a presença de compostos semelhantes pouco comuns na biologia terrestre ajudam a distinguir sua origem da contaminação. As cinco bases canônicas foram encontradas também nas amostras de Bennu, que não ficaram expostas de forma descontrolada ao ambiente terrestre. Isso fornece uma linha independente de evidência de que essas moléculas podem se formar em corpos do Sistema Solar.
Entre as moléculas extraterrestres relacionadas aos açúcares, o glicolaldeído, uma molécula orgânica oxigenada simples, foi detectado em uma protoestrela semelhante ao Sol. Ribose e outros açúcares foram encontrados em meteoritos, e as amostras de Bennu contêm ribose, glicose e outros açúcares. A eritrulose, um açúcar de quatro carbonos, também foi detectada no meio interestelar, na primeira detecção inequívoca de um açúcar nesse ambiente.
Síntese prebiótica de moléculas e polímeros


Experimentos de química prebiótica mostram caminhos para formar monômeros e outras moléculas simples ligadas à vida, mas formar polímeros longos e funcionais é outro problema. As proteínas das células usam vinte aminoácidos codificados pelo sistema genético, uma pequena seleção diante do número muito maior de estruturas químicas possíveis. Ainda não se sabe como esse conjunto foi selecionado. A formamida, por exemplo, pode participar de rotas que geram derivados de aminoácidos a partir de aldeídos e nitrilas simples.
Açúcares
Na reação de formose, o formaldeído em meio alcalino produz uma mistura de açúcares e outros compostos orgânicos. Um mecanismo autocatalítico explica parte do modo como a reação se sustenta depois de iniciada.
Bases nitrogenadas, nucleosídeos e nucleotídeos
Bases nitrogenadas como a adenina podem ser formadas a partir de fontes simples de carbono e nitrogênio, entre elas cianeto de hidrogênio (HCN) e amônia. Na Terra primitiva, HCN poderia surgir por reações fotoquímicas em atmosferas temporariamente muito redutoras depois de grandes impactos. A formamida também produz nucleobases e outros precursores de ácidos nucleicos sob diferentes combinações de minerais, temperatura e fontes de energia. Nessa mesma linha, foram obtidos nucleosídeos e reações de fosforilação e oligomerização. Esses resultados, porém, ainda não formam uma rota contínua reproduzida desde materiais simples até RNA funcional.
Outras rotas de laboratório, planejadas para serem compatíveis com condições geoquímicas, produziram ribonucleotídeos ativados de pirimidina a partir de precursores simples. Rotas para ribonucleotídeos de purina e de pirimidina também foram aproximadas dentro de conjuntos de condições compatíveis entre si. Em outra abordagem, química de alta energia da formamida produziu as quatro bases canônicas do RNA. Cada experimento resolve apenas uma parte do caminho. Ainda é preciso entender como essas rotas poderiam se conectar, se os reagentes estariam disponíveis em ambientes naturais e como os produtos chegariam a polímeros capazes de replicação.
Materiais inorgânicos oferecem outras rotas para a formação de bases nitrogenadas. O congelamento pode concentrar substâncias dissolvidas nas pequenas porções que continuam líquidas entre os cristais de gelo e também alterar a estabilidade dos produtos. Soluções diluídas de NH4CN mantidas congeladas por 25 anos produziram adenina, guanina e um conjunto simples de aminoácidos dominado por glicina. Triazinas, pirimidinas e adenina também podem surgir quando soluções de ureia passam por ciclos de congelamento e descongelamento sob atmosfera redutora e descargas elétricas.
Lipídios e outros anfifílicos
As membranas das células são formadas principalmente por fosfolipídios, cuja produção depende de enzimas. Por isso, modelos prebióticos costumam estudar ácidos graxos e outros anfifílicos mais simples, que conseguem formar agregados e vesículas em água sem a maquinaria das células. Não se sabe com segurança de onde esses compostos viriam nem em que quantidade existiriam na Terra primitiva. Entre as possibilidades estão a chegada em meteoritos carbonáceos, a síntese em superfícies metálicas ligadas a impactos, reações eletroquímicas provocadas por descargas, irradiação e reações em água.
Mesmo quando anfifílicos estão presentes, eles não formam membranas em qualquer situação. A concentração necessária muda com o comprimento das cadeias, o pH, a salinidade e a composição da mistura. Em muitos cenários, a quantidade de ácidos graxos que poderia chegar por meteoritos seria baixa demais para formar membranas sem uma etapa posterior de concentração, como evaporação. Misturas de ácidos graxos com 1-alcanóis e outros anfifílicos podem formar vesículas onde substâncias isoladas seriam instáveis, inclusive em soluções mais salinas. Síntese de lipídios, formação de micelas e vesículas e surgimento de permeabilidade seletiva já foram testados em laboratório, mas poucas condições atendem a todos esses requisitos ao mesmo tempo. A composição dos primeiros compartimentos, caso tenham existido com essas propriedades, continua sem resposta.
Fósforo, fosforilação e ativação química
O fósforo faz parte do esqueleto fosfodiéster de DNA e RNA, dos fosfolipídios e de muitos intermediários do metabolismo. Na superfície da Terra primitiva, ele poderia estar preso em minerais de fosfato, aparecer em pequenas quantidades em silicatos ou chegar em formas reduzidas mais reativas trazidas por poeira, meteoritos e asteroides. Muitos minerais mantêm o fosfato pouco solúvel, e o ortofosfato livre reage devagar em transformações de interesse prebiótico. A utilidade química do fósforo dependia, por isso, do tipo de mineral, do pH, dos íons presentes e de processos que conseguissem dissolver, concentrar ou ativar compostos de fósforo.
Fluxos de calor em fissuras com água podem separar parcialmente fosfato e cálcio liberados da apatita. Em laboratório, a termoforese concentrou fosfato em até cerca de cem vezes, aumentou fortemente sua solubilidade depois da neutralização e permitiu chegar a concentrações de até 15 mM. O mesmo sistema também favoreceu a formação de trimetafosfato durante aquecimento posterior. Isso oferece um mecanismo físico para tornar fosfato geológico mais disponível em certas condições, mas não mostra que essa tenha sido a fonte de fósforo usada na origem da vida.
A fosforilação também exige a transferência de fósforo para moléculas orgânicas. Uma rota de laboratório parte de pirofosfito e amônia para formar amidofosfito, que pode ser oxidado a monoamidofosfato e diamidofosfato. Em água, com ureia e aquecimento, esses compostos e as misturas em que se formam produziram nucleotídeos contendo fosfato ou H-fosfonato a partir de nucleosídeos, com rendimentos de até 65%. Os experimentos tratam de etapas diferentes, uma de disponibilidade do fósforo e outra de sua ativação química. Ainda não existe uma única rota reproduzida que vá de minerais naturais ao conjunto de compostos fosforilados necessário para um sistema vivo.
Peptídeos
peptídeos podem se formar por mais de uma rota prebiótica. Algumas exigem temperaturas ou concentrações elevadas, que favorecem reações de condensação. Outras usam substâncias capazes de ativar ou unir os reagentes, desde que essas substâncias também possam ser explicadas pelas condições da Terra primitiva.
Ciclos de umedecimento e secagem, combinados com certos sais, podem favorecer a união espontânea de moléculas de glicina em cadeias de poliglicina. Minerais também podem acelerar a formação de peptídeos. O efeito não é sempre favorável ao acúmulo, porque calcita, rutilo e pirita também podem acelerar a quebra de peptídeos por hidrólise. O resultado depende do equilíbrio entre formação e degradação.
Entre os agentes de condensação ou ativação considerados em química prebiótica estão cianamida, dicianamida, diciandiamida, diaminomaleonitrila, ureia, trimetafosfato, NaCl, CuCl2, sulfetos de níquel e ferro, CO, sulfeto de carbonila, dissulfeto de carbono, SO2 e fosfato de diamônio. Argilas também foram testadas como superfícies para síntese de peptídeos.
Peptídeos também podem surgir diretamente de moléculas mais simples, como CO, NH3 e carbono atômico, sem que aminoácidos livres precisem ser formados primeiro.
Concentração, ativação e polimerização
Formar monômeros é apenas o começo, porque proteínas e ácidos nucleicos dependem de cadeias muito maiores. Esses polímeros são produzidos por reações de condensação, mas em água as mesmas ligações podem ser quebradas por hidrólise. Por isso, a química prebiótica precisa explicar como reagentes diluídos poderiam se concentrar, como certos grupos químicos seriam ativados e como a energia dessa ativação poderia favorecer a formação seletiva de novas ligações.
Ciclos de umedecimento e secagem aumentam temporariamente a concentração das substâncias dissolvidas e reduzem a quantidade de água disponível para as reações. Em laboratório, esse processo favoreceu a união de glicina em poliglicina. Os mesmos ciclos também ligaram mononucleotídeos por ligações fosfodiéster e produziram oligômeros de UMP com até 53 nucleotídeos detectáveis. Em outros testes, 2′,3′-nucleotídeos cíclicos das quatro bases formaram oligômeros durante ciclos úmido-seco sem ativadores externos, e aminoácidos aumentaram em mais de cem vezes a copolimerização de ribonucleosídeos 2′,3′-fosfato cíclicos em condições alcalinas próximas da temperatura ambiente.
Além da evaporação, fluxos de calor em fissuras finas conseguem concentrar misturas diluídas de componentes prebióticos em até mil vezes e aumentar sua reatividade. Poros com gradientes térmicos também conseguem acumular nucleotídeos diluídos por convecção e termoforese. Em superfícies minerais, a montmorilonita catalisa a formação de oligômeros a partir de ribonucleotídeos previamente ativados. Cada processo resolve uma parte do problema, mas nenhum deles, sozinho, mostra uma passagem contínua de monômeros diluídos para polímeros autorreplicantes.
Homoquiralidade
A homoquiralidade ocorre quando uma das duas orientações possíveis de moléculas quirais predomina fortemente. Nas células, as proteínas são feitas quase sempre com aminoácidos da forma L, enquanto DNA e RNA usam açúcares da forma D. Sem alguma fonte de assimetria, reações abióticas costumam produzir misturas racêmicas, com as duas formas em proporções semelhantes. Há processos físicos e químicos capazes de produzir pequenos excessos de uma orientação, mas nenhum mecanismo foi estabelecido como a origem histórica da homoquiralidade terrestre.
Luz circularmente polarizada em regiões de formação estelar poderia criar um pequeno excesso de uma orientação antes mesmo da formação dos planetas. Alguns meteoritos apresentam excesso da forma L em aminoácidos não proteicos, mas isso não acontece de modo geral. Nas amostras de Bennu, todos os aminoácidos quirais não proteicos medidos eram racêmicos ou quase racêmicos, sem uma preferência geral pela forma L.
Mesmo uma diferença inicial muito pequena pode crescer em redes autocatalíticas e em outros sistemas afastados do equilíbrio. A reação de Soai mostra em laboratório uma autocatálise assimétrica na qual um produto quiral favorece a produção de mais moléculas com a mesma orientação.
Informação, replicação e catálise


Hipótese do mundo de HAPs
A hipótese do mundo de Hidrocarbonetos aromáticos policíclicos e propostas próximas do "mundo aromático" consideram que conjuntos de HAPs e outros compostos aromáticos poderiam ter ajudado a organizar precursores de polímeros capazes de armazenar informação antes de um estágio dominado pelo RNA. Material aromático relacionado a HAPs é abundante no meio interestelar, mas ainda não foi obtida em laboratório uma rota completa desse tipo até um sistema que se replique.
Mundo do RNA
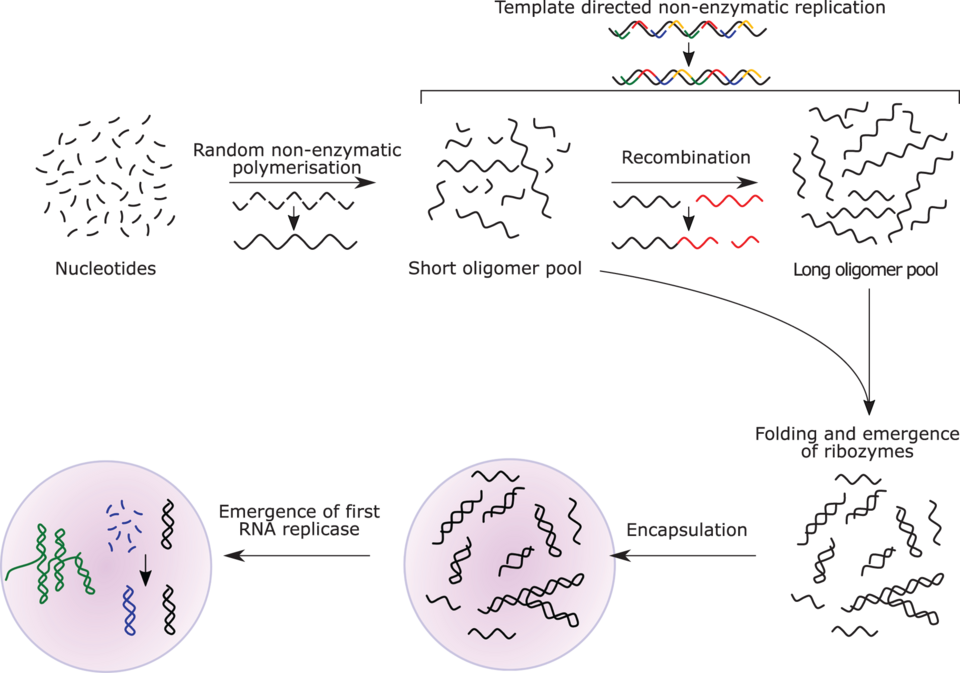
A hipótese do mundo do RNA propõe uma etapa antiga em que o RNA teria acumulado duas funções que nas células recentes estão distribuídas entre sistemas diferentes: armazenar informação e catalisar reações. Esse estágio teria vindo antes do sistema atual baseado em DNA, RNA e proteínas. A hipótese não exige que toda a química da época fosse formada apenas por RNA, e admite que peptídeos e outros componentes já participassem do sistema. A ideia começou a ser formulada antes que a expressão "RNA world" se estabelecesse na literatura científica. Entre as hipóteses para a passagem até o sistema DNA-RNA-proteína, o mundo do RNA é uma das mais desenvolvidas, embora o RNA possa ter sido precedido por outro sistema autorreplicante.
Possíveis sistemas genéticos anteriores ao RNA
RNA e DNA não são as únicas estruturas químicas capazes de armazenar informação e participar de processos evolutivos. O ácido nucleico de treose (TNA), que usa um açúcar de quatro átomos de carbono, consegue se parear com RNA. Em seleção in vitro, moléculas de TNA foram capazes de se dobrar e reconhecer alvos específicos, mostrando que esse polímero pode adquirir função por evolução dirigida.
Seis tipos de ácidos xenonucleicos também tiveram informação armazenada e recuperada por polimerases modificadas, e alguns formaram aptâmeros que podiam ser selecionados. Como esses sistemas dependem de enzimas modernas ou modificadas para serem sintetizados e copiados, eles não mostram que TNA, XNAs ou qualquer outro polímero específico tenham existido antes do RNA na Terra. O resultado mostra que hereditariedade e evolução não dependem obrigatoriamente da estrutura química do RNA ou do DNA, deixando aberta a possibilidade de sistemas anteriores.
Catálise e replicação
Ribozimas mostram que moléculas de RNA podem guardar informação e também acelerar reações químicas. Pequenos RNAs catalíticos conseguem transferir grupos químicos e realizar outras reações de interesse para modelos nos quais a catálise por RNA surgiu antes das proteínas.
Uma Replicase de RNA teria uma função especialmente útil nesse cenário, pois poderia carregar informação e ajudar a produzir novas moléculas de RNA. Alguns RNAs catalíticos já conseguem unir sequências menores e gerar cópias adicionais em sistemas experimentais, criando formas limitadas de autorreplicação. O RNA também foi estudado em condições que imitam ambientes hidrotermais e regiões geladas. Sequências parecidas com RNA transportador puderam ainda se organizar em sistemas replicadores. Quando um sistema consegue se replicar com hereditariedade, variação e diferenças de sucesso reprodutivo, a seleção darwiniana pode começar a agir sobre a população de replicadores.
Origem da tradução e do código genético
Nas células, a tradução depende de RNAs transportadores carregados com os aminoácidos corretos. Essa ligação, chamada aminoacilação, é feita principalmente por aminoacil-tRNA sintetases. Como essas enzimas são proteínas produzidas pelo próprio sistema de tradução, a origem desse sistema apresenta um problema circular: é preciso explicar como o RNA podia receber aminoácidos com alguma seletividade antes de as enzimas responsáveis por essa tarefa existirem. O ribossomo conserva outro sinal do papel antigo do RNA, porque seu centro de peptidil transferase, onde as ligações peptídicas são formadas, é constituído principalmente por RNA ribossômico.
Em um sistema sem enzimas, a aminoacilação do RNA variou conforme a sequência dos três pares de bases terminais de um modelo da haste aceptora de tRNA. A escolha dos produtos e de sua orientação espacial também mudou com essa sequência. O resultado é compatível com propostas nas quais informações químicas na haste aceptora vieram antes da correspondência moderna entre códons, anticódons e aminoácidos, mas não reconstrói como essa correspondência surgiu.
Derivados de aminoácidos ativados por enxofre também conseguem aminoacilar seletivamente a extremidade 2′,3′ do RNA em água para muitos aminoácidos usados nas proteínas. Uma etapa relacionada produziu peptidil-RNA sem enzimas evoluídas. Esse tipo de experimento aproxima aminoacilação e formação de peptídeos, mas ainda não produz um ribossomo nem associa aminoácidos aos códons como acontece nas células.
O código genético padrão é quase universal entre os organismos conhecidos, com alguns desvios principalmente em organelas e em certos procariotos. Sua organização não parece aleatória, mas não existe uma reconstrução única de como as associações entre códons e aminoácidos se formaram. Entre as propostas estão afinidades químicas entre aminoácidos e RNA, coevolução com as rotas de síntese de aminoácidos, seleção de um código que reduzisse os efeitos de erros e fixação contingente de associações durante a expansão de um código mais simples. Mais de um desses processos pode ter participado.
Protometabolismo e aproveitamento de energia


Energia e entropia
A vida pode manter alto grau de organização sem violar a segunda lei da termodinâmica porque um organismo não é um sistema isolado. Sistemas abertos recebem energia e matéria do ambiente e podem manter ordem local enquanto dissipam energia e aumentam a entropia total ao redor.
Na Terra primitiva, luz solar, calor geotérmico e descargas elétricas na atmosfera estavam entre as fontes de energia disponíveis. Outros mecanismos também podem impulsionar reações. Ondas de choque aplicadas a misturas gasosas usadas como modelos de atmosfera produziram aminoácidos, e cavitação ou sonólise em soluções aquosas produziram aminoácidos e, em outros sistemas, nucleosídeos de purina.
Em água, sulfetos de ferro e níquel podem acelerar reações protometabólicas, e NiS e FeS converteram monóxido de carbono e metanotiol em um tioéster ativado que depois se hidrolisou em ácido acético. Superfícies de (Ni,Fe)S também favoreceram a formação de peptídeos a partir de aminoácidos na presença de CO e H2S ou metanotiol, a 100 °C e sem oxigênio. Esses testes estabelecem rotas químicas possíveis, sem mostrar que alguma delas tenha sido o primeiro metabolismo da Terra.
Metabolismo primeiro e superfícies minerais
Nos modelos de "metabolismo primeiro", redes de reações químicas simples teriam aparecido antes de um sistema genético completo. A hipótese do mundo ferro–enxofre, formulada por Günter Wächtershäuser, propõe um metabolismo de superfície em que sulfetos metálicos forneceriam energia e catálise antes da existência de enzimas e moldes genéticos. Em condições de laboratório que imitam alguns ambientes vulcânicos ou hidrotermais, aminoácidos foram transformados em peptídeos na presença de sulfetos de níquel e ferro, monóxido de carbono e H2S ou metanotiol, a 100 °C e sem oxigênio. Isso mostra uma rota geoquímica para ativar e unir aminoácidos, mas não constitui por si só uma rede metabólica com hereditariedade e evolução.
Pares reversíveis de piridínio e 1,4-di-hidropiridina, propostos como versões simples de cofatores redox, conseguiram ligar sem enzimas duas classes de reações, a descarboxilação oxidativa e a aminação redutiva de α-cetoácidos. O sistema produziu succinato, acetato, formiato, glutamato, alanina e glicina. O experimento mostra que moléculas simples podem acoplar reações de oxidação e redução em uma rede protometabólica, mas não prova que esse mecanismo específico tenha existido na Terra primitiva.
Quimiosmose
Na quimiosmose, a transferência de elétrons pode ser ligada à fosforilação por meio de um gradiente eletroquímico de prótons através de uma membrana. Nas células, gradientes desse tipo alimentam a ATP sintase. Nas mitocôndrias, prótons atravessam a enzima a favor do gradiente e provocam movimentos rotacionais e mudanças de forma que impulsionam a produção de adenosina trifosfato (ATP) a partir de ADP e fosfato.
Enquanto as células recentes usam bombas iônicas para criar e manter esses gradientes, modelos de fontes hidrotermais alcalinas propõem que uma diferença natural de pH entre o fluido da fonte e a água do oceano poderia fornecer uma força próton-motriz antes de existirem bombas iônicas. Em lipossomos usados como modelo, compostos semelhantes a quinonas extraídos de condritos carbonáceos transportaram elétrons e geraram gradientes de pH quando o doador e o aceptor redox ficaram em lados opostos da membrana.
Compartimentalização e protocélulas


Membranas e vesículas
A hipótese do "mundo lipídico" propõe que agregados de moléculas semelhantes a lipídios, capazes de crescer e manter uma composição característica ao se reproduzir, poderiam ter vindo antes de sistemas genéticos mais complexos.
Em água, fosfolipídios formam bicamadas lipídicas e vesículas, mas os tipos usados pelas células recentes provavelmente não estavam disponíveis na Terra primitiva, onde anfifílicos mais simples também poderiam formar membranas. Essas vesículas podem incorporar novos lipídios, crescer, dividir-se em certas condições e reter moléculas grandes no interior. O conteúdo interno pode até influenciar o crescimento. Em um sistema modelo, RNA preso dentro de vesículas de ácidos graxos aumentou a pressão osmótica e fez essas vesículas incorporar lipídios de outras ao redor, ligando uma propriedade do material genético ao crescimento do compartimento.
Uma protocélula é um sistema químico compartimentalizado usado para estudar etapas possíveis entre a química prebiótica e as células. Para que um sistema desse tipo participe de evolução darwiniana, não basta que cresça ou se divida. Ele também precisa gerar diferenças hereditárias e produzir descendentes com taxas de reprodução diferentes. Vesículas que se organizam sozinhas oferecem uma forma simples de compartimentalização. Como sistemas abertos podem reduzir a entropia local ao mesmo tempo que aumentam a entropia total do sistema e de seu ambiente, a formação desses compartimentos não contraria a segunda lei da termodinâmica. A própria fronteira criada pela membrana separa reações internas do meio exterior.
Vesículas simples podem segurar moléculas grandes e ainda permitir a passagem de algumas moléculas menores, uma propriedade útil para modelos de protocélula. Membranas também podem manter gradientes eletroquímicos. Em experiências que imitavam certas condições hidrotermais alcalinas, a adição de isoprenoides deixou membranas de ácidos graxos mais estáveis em soluções salinas e na presença de partículas de ferro e FeS. Não se sabe se esses isoprenoides estariam disponíveis por rotas prebióticas. Diferenças físicas entre anfifílicos alifáticos e isoprenoides também foram propostas como uma possível etapa anterior à separação entre as membranas bacterianas e arqueanas.
Coacervados e condensados
Outros modelos usam coacervados e condensados formados por separação de fases líquido-líquido. Essas gotículas não têm membrana lipídica, mas conseguem concentrar nucleotídeos, RNA, peptídeos e moléculas pequenas, o que ajuda a enfrentar o problema de reagentes muito diluídos. Em certas condições, coacervados crescem e se dividem. A tendência das gotas a se fundir e a dificuldade de ligar crescimento, replicação e divisão a características hereditárias, porém, ainda limitam seu uso como modelo de um sistema capaz de evolução aberta. RNA catalítico continua funcionando dentro de algumas microgotas coacervadas. Essas gotas também podem reter com preferência moléculas maiores de RNA enquanto oligonucleotídeos menores entram e saem do compartimento.
Superfícies minerais e encapsulamento
A montmorilonita liga experimentalmente dois problemas que costumam ser estudados em separado, a formação de polímeros e a formação de compartimentos. Essa argila catalisa a união de ribonucleotídeos ativados e pode produzir cadeias com dezenas de unidades. Ela também acelera a transformação de micelas de ácidos graxos em vesículas, e partículas da própria argila, inclusive com RNA preso à superfície, podem acabar dentro dessas vesículas. Como os experimentos com RNA começam com nucleotídeos já ativados, eles não explicam sozinhos como esses reagentes seriam produzidos e mantidos em um ambiente natural da Terra primitiva.
Ciclos de pressão e estabilidade de vesículas
Variações repetidas de pressão em um modelo de zona de falha tectônica fizeram vesículas formadas por anfifílicos aparecerem e desaparecerem em ciclos. No mesmo tipo de sistema, um peptídeo com afinidade pela membrana se acumulou e alterou a permeabilidade e a estabilidade das vesículas diante do calor. Esses resultados pertencem a um modelo específico e não mostram que ciclos de pressão realmente tenham participado da origem da vida.
Integração de sistemas e início da evolução darwiniana


Para que a evolução darwiniana começasse, sistemas químicos simples teriam de formar protocélulas capazes de gerar descendentes com diferenças hereditárias que afetassem sua eficiência de reprodução.
Acoplamento entre processos
Replicação, transformação de energia, catálise e compartimentalização já podem ser produzidas separadamente em sistemas experimentais. Um sistema parecido com vida, porém, exige que essas funções passem a sustentar e controlar umas às outras dentro do mesmo conjunto químico. A química de sistemas estuda justamente essa integração em condições afastadas do equilíbrio. Nenhum sistema sintético reuniu de forma autônoma reprodução sustentada, metabolismo, compartimentalização, hereditariedade e evolução aberta ao mesmo tempo.
Em um dos sistemas que já juntaram partes desse problema, um autorreplicador sintético recrutou um cofator fotocatalítico capaz de transformar tióis do meio em precursores dissulfeto usados na própria replicação. Com isso, a produção de matéria-prima e o crescimento do replicador passaram a reforçar um ao outro. O sistema não era uma célula nem pretendia reconstruir uma rota histórica da Terra primitiva, mas mostra que replicação e uma função protometabólica podem se tornar interdependentes.
Superfícies minerais também podem aproximar hipóteses de "metabolismo primeiro" dos modelos de RNA e compartimentalização. A montmorilonita forma oligômeros de RNA a partir de nucleotídeos ativados e influencia quais ligações são produzidas. A mesma argila acelera a formação de vesículas e favorece o encapsulamento de RNA preso à sua superfície. Isso mostra que catálise mineral e compartimentalização podem ocorrer no mesmo sistema experimental. Como os monômeros de RNA já precisam estar ativados, continua em aberto de onde viriam esses reagentes e como se acumulariam em ambientes naturais.
Seleção molecular e protocelular
Vesículas de ácidos graxos podem competir pelas moléculas que formam suas membranas. Em laboratório, vesículas com RNA encapsulado cresceram às custas de outras vesículas menos tensionadas.
Em um experimento com RNA do bacteriófago Qβ cultivado fora de células na presença da replicase Qβ, variantes que se replicavam mais rapidamente tornaram-se mais comuns. Como o sistema dependia de uma enzima moderna, ele não é um modelo direto de replicação prebiótica. Ainda assim, mostra que mutação e seleção podem mudar rapidamente uma população de moléculas autorreplicantes.
Protocélulas sintéticas
Lipossomos contendo DNA autorreplicante e parte da maquinaria necessária para copiá-lo conseguiram manter a amplificação por ciclos sucessivos e acumular mutações que aumentaram a aptidão do replicador, produzindo evolução darwiniana em uma protocélula sintética. Esse sistema usava componentes bioquímicos purificados e exigia intervenção entre os ciclos, por isso ainda não correspondia a uma célula sintética autônoma capaz de realizar sozinha toda a própria reprodução.
Ambientes propostos para a origem da vida


Não existe um único ambiente geológico aceito como o local onde a vida começou. As propostas diferem porque cada ambiente oferece combinações próprias de água, energia, minerais, reagentes, temperatura, salinidade e mecanismos de concentração, e também porque ainda não se sabe quais características pertenciam aos sistemas mais antigos.
Fontes hidrotermais profundas
Fluidos quentes
Nas hipóteses de origem em fontes hidrotermais profundas ou alcalinas, a química é impulsionada pelo forte desequilíbrio criado quando fluidos da crosta encontram a água do mar. O H2 produzido por serpentinização pode funcionar como fonte de elétrons, enquanto diferenças de pH fornecem energia química. Superfícies minerais e pequenos poros nas chaminés também podem catalisar reações e concentrar substâncias que no oceano aberto ficariam muito diluídas. As reconstruções do LUCA, porém, não permitem escolher um único local de origem e não mostram com segurança que ele fosse hipertermófilo.
Essas fontes podem se formar quando a água reage com rochas ultramáficas ricas em olivina, num processo chamado serpentinização. Os fluidos resultantes podem ser alcalinos e ricos em hidrogênio. Quando chegam ao fundo do mar e encontram água relativamente rica em dióxido de carbono, surgem interfaces com diferenças de pH. Reações de oxirredução entre doadores de elétrons, como H2, e aceptores, como CO2, podem liberar energia útil para outras reações químicas.
Gradiente quimiosmótico
A diferença de pH entre o fluido alcalino da fonte e a água do mar pode criar um gradiente de prótons sem participação de células. Microporos minerais poderiam ao mesmo tempo reter e concentrar reagentes, e minerais de ferro e enxofre, como mackinawita, ofereceriam superfícies catalíticas parecidas com as propostas por Günter Wächtershäuser. A passagem de íons através de uma membrana depende de dois efeitos que atuam juntos:
- a difusão causada pela diferença de concentração, que tende a levar partículas e íons da região mais concentrada para a menos concentrada;
- a força eletrostática causada pela diferença de potencial elétrico, que faz cátions como H+ se deslocarem em direção ao potencial mais baixo e ânions na direção oposta.
Juntos, esses efeitos formam um gradiente eletroquímico que pode armazenar energia. A força próton-motriz expressa a energia potencial associada à diferença de concentração de prótons e à diferença de potencial elétrico através de uma membrana.
Minerais de sulfeto de ferro também conseguem catalisar reações relevantes. Partículas de greigita reduziram CO2 dissolvido em laboratório e produziram metanol, ácido fórmico, ácido acético e ácido pirúvico.
Fontes hidrotermais são estudadas há décadas como possíveis cenários para a origem da vida. Reações espontâneas entre água e rocha, mantidas fora do equilíbrio termodinâmico, também são examinadas como possíveis antecedentes de partes da bioquímica. Uma proposta relacionada interpreta linhagens antigas de arqueias e bactérias como autótrofos que dependiam de H2 e usavam CO2 como aceptor final de elétrons no metabolismo energético.
Chaminés hidrotermais alcalinas sintéticas também foram usadas para testar a formação de pequenas cadeias de RNA. Em certas condições, ribonucleotídeos não ativados formaram dímeros, enquanto nucleotídeos ativados com imidazol formaram oligômeros de até quatro unidades.
Os poros das chaminés também podem funcionar como compartimentos de concentração. Em modelos com gradientes térmicos, nucleotídeos inicialmente diluídos se acumulam por termoforese e convecção. Em outra linha de química protometabólica, ferro ferroso promoveu uma rede aquosa na qual piruvato e glioxilato produziram nove dos onze intermediários do ciclo de Krebs, entre eles os cinco precursores metabólicos universais.
A profundidade protege esses ambientes de boa parte da radiação ultravioleta e pode oferecer energia geoquímica de forma contínua. A idade estimada do LUCA é compatível com uma origem muito antiga, mas relógios moleculares não informam onde a abiogênese aconteceu. Eles não distinguem entre fontes hidrotermais, ambientes superficiais ou outros cenários.
Argumentos contra uma origem em fontes hidrotermais
A presença de organismos adaptados ao calor em ramos profundos da árvore da vida não exige que o LUCA tenha sido hipertermófilo. A adaptação a altas temperaturas pode ter surgido separadamente em bactérias e arqueias, e algumas reconstruções são compatíveis com ancestrais mesófilos. A temperatura ótima de crescimento do LUCA continua sem resolução.
A composição de uma fonte hidrotermal varia com a rocha que a alimenta, a temperatura, a pressão e o caminho percorrido pelo fluido. Por isso, uma substância encontrada na água que sai da fonte pode ter se formado em outro ponto da crosta. Em Lost City, parte do metano pode vir de fluidos que ficaram aprisionados mais profundamente na crosta oceânica.
Outro problema é a diluição no oceano, especialmente para reações que exigem altas concentrações. Modelos hidrotermais tentam contornar isso com microporos minerais e gradientes térmicos que concentram solutos. O fósforo também pode ser difícil de obter em formas disponíveis. Lagos alcalinos conseguem concentrar fosfato muito acima dos níveis encontrados em águas oceânicas, como ocorre no Last Chance Lake, usado como análogo em pesquisas de química prebiótica. Isso dá uma vantagem a alguns cenários de superfície, sem excluir outras fontes de fósforo ou mecanismos de concentração em ambientes hidrotermais.
Soluções muito ricas em íons podem desestabilizar membranas simples de ácidos graxos. Misturas de ácidos graxos, 1-alcanóis e outros anfifílicos são mais resistentes e conseguem formar vesículas em algumas condições salinas nas quais um único componente falha. Qualquer cenário precisa mostrar que membranas, sais, fontes de energia, compostos orgânicos e polimerização conseguem funcionar juntos no mesmo ambiente, e não apenas em experiências separadas com condições incompatíveis.
Corpos de água superficiais
Lagos, lagoas e outras massas de água na superfície podem alternar entre períodos úmidos e secos. A evaporação concentra os reagentes e pode favorecer reações de condensação, como a formação de peptídeos e oligômeros de ácidos nucleicos observada em laboratório. Esses ambientes também podem receber substâncias liberadas pelo intemperismo de rochas. Embora a quantidade de terra exposta no Hadeano seja incerta, modelos permitem a existência de ilhas e outras áreas emersas.
A radiação ultravioleta pode ajudar algumas reações e destruir outras. Certas rotas propostas para formar ribonucleotídeos dependem de etapas fotoquímicas, mas a mesma radiação pode degradar moléculas orgânicas. O Sol jovem provavelmente emitia mais radiação energética, e sem uma camada de ozônio a radiação ultravioleta de ondas curtas alcançava a superfície com facilidade. Ambientes parcialmente protegidos poderiam receber produtos formados em áreas iluminadas e ao mesmo tempo reduzir a exposição direta. Gelo, água, minerais, argila e regolito podem oferecer essa proteção.
Fontes termais
Fontes termais de superfície combinam água aquecida geotermicamente, material vindo do subsolo e substâncias transportadas pelo escoamento superficial. Nas margens e em pequenas poças, evaporação e reidratação podem produzir ciclos repetidos de concentração. Esse cenário não exige que o LUCA fosse termófilo, algo que as reconstruções filogenômicas não estabelecem com segurança.
Se sistemas celulares antigos exigiam razões altas de K+ em relação a Na+, além de Mn2+, Zn2+ e fosfato, muitos ambientes marinhos não ofereceriam naturalmente essa combinação iônica. Certos campos geotérmicos terrestres, como os de Kamchatka, oferecem condições mais próximas desse perfil. Em uma atmosfera sem oxigênio, depósitos minerais nesses locais poderiam ter pH favorável e sulfetos capazes de bloquear parte da radiação ultravioleta. Ciclos de umedecimento e secagem concentrariam reagentes e favoreceriam a formação de polímeros, enquanto períodos de exposição à radiação UV poderiam alimentar algumas reações fotoquímicas. Fontes termais de superfície reúnem, assim, energia geotérmica e processos típicos de ambientes expostos ao ar e à luz.
Comparações entre os íons necessários a proteínas e sistemas celulares conservados e a composição de campos geotérmicos anóxicos também foram usadas em modelos nos quais protocélulas trocavam pequenos íons com o ambiente. Material orgânico poderia chegar por poeira interplanetária e meteoritos ou ser produzido por reações atmosféricas e geoquímicas. Terrenos vulcânicos do Hadeano também podem ter contido muitas fontes termais. Experimentos com ciclos úmido-seco produziram cadeias de mononucleotídeos com dezenas de unidades e oligômeros de nucleotídeos cíclicos sem ativadores externos. Esses resultados tornam a concentração e a condensação em superfícies periodicamente secas quimicamente plausíveis, mas não mostram que a vida tenha começado nesse tipo de ambiente.
Corpos de água temperados
Cenários mesófilos retomam a ideia da "pequena lagoa morna" de Darwin e partes da hipótese de Oparin e Haldane. Lagos e lagoas de água doce podem acumular compostos prebióticos e passar por mudanças de nível, temperatura e concentração. O clima do Arqueano não é conhecido com precisão, mas dados geoquímicos e modelos atmosféricos permitem concentrações de gases de efeito estufa capazes de manter temperaturas superficiais entre cerca de 0 e 40 °C, faixa compatível com sistemas mesófilos.
Lagos de soda são um exemplo de ambiente superficial alcalino que pode ser testado diretamente. Água natural dos lagos Last Chance e Goodenough, no Canadá, permitiu em laboratório que ribonucleotídeos ativados fossem adicionados sem enzimas a moldes de RNA em velocidades comparáveis às obtidas em soluções laboratoriais preparadas para esse fim. Com outras diluições e valores de pH, a mesma água permitiu atividade de uma ribozima ligase e formação de vesículas de ácidos graxos. Isso faz desses lagos um cenário que pode ser reproduzido experimentalmente, sem provar que a abiogênese tenha ocorrido neles.
Algumas tentativas de estimar a temperatura de organismos antigos usam o conteúdo de G+C do RNA ribossômico. Pares G+C estabilizam o RNA mais que pares A+U, e em procariotos recentes o conteúdo de G+C do RNA ribossômico se relaciona à temperatura ótima de crescimento. Uma reconstrução ancestral foi incompatível com um ancestral universal hipertermófilo.
Termófilos recentes também não precisam ter herdado sua adaptação diretamente do LUCA. Altas temperaturas podem ter selecionado características semelhantes por evolução convergente, e genes podem ter sido transferidos entre linhagens por transferência horizontal de genes. A girase reversa, uma topoisomerase característica de muitos termófilos e hipertermófilos, usa ATP. Sua distribuição é melhor explicada por uma origem em arqueias e transferências posteriores para bactérias do que por presença universal no LUCA.
Corpos de água gelados
Hipóteses de origem fria consideram períodos ou regiões com grande cobertura de gelo. O Sol jovem era cerca de 25% menos luminoso que o recente, mas o registro geológico mostra que havia água líquida, provavelmente mantida por gases de efeito estufa. A Terra primitiva poderia, assim, ter oceanos líquidos ao mesmo tempo que extensas regiões polares permaneciam congeladas.
Água de degelo pode formar pequenas lagoas de água doce e, quando essas lagoas encolhem ou secam, concentrar reagentes. Na superfície do gelo, a radiação ultravioleta seria intensa. Dentro ou sob o gelo, a água estaria protegida, embora fissuras ainda pudessem permitir contato com produtos formados nas áreas iluminadas. Impactos também poderiam derreter gelo, produzir água doce e acrescentar material meteorítico. Como salinidades próximas às da água do mar desestabilizam membranas simples de ácidos graxos, ambientes de água doce também são considerados em modelos de compartimentos primitivos.
O frio diminui a velocidade de muitas reações, mas pode aumentar a estabilidade de moléculas frágeis. Quando a água congela, os cristais de gelo excluem parte dos solutos e os concentram nas pequenas regiões que permanecem líquidas. Experimentos sob condições semelhantes às propostas para Europa produziram aminoácidos e adenina, mostrando que síntese prebiótica pode ocorrer a baixas temperaturas. O RNA também precisa se dobrar de forma adequada para funcionar. Temperaturas altas dificultam esse dobramento em modelos e ensaios com RNA transportador, enquanto o gelo pode estabilizar certas estruturas e sustentar a evolução experimental de ribozimas.
Interior da crosta continental
Redes de falhas na crosta continental oferecem outro ambiente possível, mais protegido da superfície e capaz de permanecer ativo por longos períodos. Em fissuras e cavidades profundas, água e dióxido de carbono poderiam funcionar como solventes. Mudanças de pressão e temperatura fariam o CO2 passar pelos estados líquido, gasoso ou supercrítico, criando fases diferentes nas quais moléculas se distribuiriam de modos distintos. Esses sistemas também podem receber monóxido de carbono, hidrogênio, amônia, cianeto de hidrogênio, nitrogênio e fosfato, além de aminoácidos, aminas de cadeia longa, ácidos graxos e aldeídos.
As mudanças de pressão e temperatura também podem fazer moléculas orgânicas migrarem entre uma fase aquosa e outra rica em CO2. No mesmo tipo de modelo, variações de pressão produziram ciclos de formação e desaparecimento de vesículas. A utilidade desse mecanismo para a Terra primitiva depende de condições locais de pressão, temperatura, composição e disponibilidade de anfifílicos, por isso continua hipotética.
Cenários combinados e transporte entre ambientes
A química que antecedeu a vida pode ter passado por ambientes diferentes em vez de acontecer inteira no mesmo lugar. Compostos formados na atmosfera, em sistemas hidrotermais, durante impactos ou em águas superficiais poderiam ser transportados por chuva, escoamento, circulação subterrânea e processos hidrotermais. Isso permitiria separar etapas com exigências incompatíveis, como exposição à radiação ultravioleta, condições redutoras, concentração por evaporação e proteção contra radiação.
Mover intermediários de um ambiente para outro cria, porém, novos problemas que também precisam de solução. As moléculas teriam de sobreviver ao transporte, chegar em concentrações úteis e passar por mudanças de pH, salinidade, temperatura e estado redox que pudessem ocorrer por processos naturais. Combinar cenários pode resolver incompatibilidades entre etapas, mas não substitui a necessidade de reproduzir cada reação e verificar a continuidade entre elas.
Da vida primitiva ao LUCA


O primeiro organismo terrestre provavelmente era diferente do LUCA, e entre seu surgimento e as primeiras separações reconstruídas pelas filogenias recentes existe um intervalo de duração desconhecida. Nesse intervalo podem ter ocorrido transferências de genes, extinções e adaptações a ambientes distintos. Como esses precursores não formam um grupo de organismos que ainda exista, os genomas recentes permitem reconstruir o LUCA com muito mais segurança do que os sistemas que vieram antes dele.
Filogenia e reconstruções do LUCA
.
Comparações de RNA ribossômico permitiram distinguir linhagens bacterianas e arqueanas. As reconstruções filogenômicas colocam o LUCA antes da separação entre Bacteria e Archaea, embora a forma das ramificações mais antigas mude conforme os genes e os modelos usados. Uma dessas reconstruções estimou que o LUCA viveu há cerca de 4,2 bilhões de anos, dentro de um intervalo de 4,09 a 4,33 bilhões de anos. Essa idade vem de relógios moleculares e depende das calibrações e das premissas do modelo, por isso não tem a mesma segurança de uma data obtida diretamente de rochas ou fósseis.
Uma reconstrução baseada na distribuição dos genes e em critérios de transferência vertical propôs 355 grupos de proteínas como prováveis componentes do LUCA e inferiu um organismo anaeróbio, termófilo, capaz de fixar carbono pela via de Wood-Ljungdahl e possivelmente também de fixar nitrogênio. Essas características dependiam do conjunto de genes aceito pelo método e não formavam uma descrição consensual do LUCA.
Uma reconstrução probabilística posterior estimou um genoma de 2,75 milhões de pares de bases, com intervalo de 2,49 a 2,99 milhões, e cerca de 2.657 proteínas, com intervalo de 2.451 a 2.855. Entre os genes analisados, 399 grupos de ortólogos KEGG apareceram com alta probabilidade e estavam presentes nos dois domínios procarióticos. O resultado foi compatível com um LUCA de organização celular comparável à de procariotos, anaeróbio e acetogênico, com uma via de Wood-Ljungdahl mais completa que a obtida na reconstrução anterior. Não houve evidência forte de nitrogenase ou fixação de nitrogênio, e a temperatura e o habitat de crescimento continuaram sem uma resposta definitiva. Essa reconstrução também colocou o LUCA dentro de um ecossistema microbiano, em vez de tratá-lo como um organismo isolado.
As características fisiológicas do LUCA ainda são discutidas, principalmente quando se tenta inferir sua relação com altas temperaturas e outros aspectos do ambiente. Em outra análise, cerca de sessenta proteínas estavam conservadas em todos os genomas usados, em sua maioria ligadas ao processamento da informação genética. Um conjunto tão menor que o obtido por reconstruções posteriores mostra quanto o retrato do LUCA pode mudar com a amostragem e o método.
Religião e recepção pública


Narrativas de criação
Muito antes do desenvolvimento das explicações científicas para a origem da vida, sociedades de diferentes épocas formularam narrativas sobre a origem do mundo, dos seres vivos e da humanidade. Elas variam entre tradições religiosas e culturais e podem reunir cosmogonia, genealogias divinas, formação da Terra e criação dos seres humanos. Em civilizações antigas, ideias sobre a origem e a organização do Universo eram muitas vezes expressas por mitos ou narrativas sagradas que também situavam a humanidade dentro de uma ordem cósmica. A abiogênese responde a outra pergunta, pois procura reconstruir com métodos testáveis da química, geologia e biologia os processos naturais que poderiam ter levado da matéria não viva aos primeiros sistemas vivos. Narrativas de criação podem ter funções religiosas, filosóficas ou culturais, mas causas sobrenaturais que não podem ser submetidas a testes experimentais não constituem hipóteses científicas concorrentes.
Relações com a religião
As relações entre explicações naturais para a origem da vida e crenças religiosas variaram muito conforme a época e a tradição. Na Europa medieval, ideias aristotélicas de geração espontânea chegaram a conviver com a teologia cristã, porque alguns autores aceitavam que processos naturais pudessem ocorrer dentro de uma criação divina. A rejeição experimental da geração espontânea no século XIX mudou a questão científica sem resolver perguntas teológicas sobre criação, finalidade ou ação divina. Os debates posteriores sobre evolução e origem da vida reuniram problemas diferentes, que não recebem necessariamente a mesma resposta dentro de uma mesma tradição religiosa.
Algumas correntes criacionistas defendem uma intervenção sobrenatural direta na origem ou na diversidade dos seres vivos, enquanto outras interpretações religiosas aceitam que processos naturais possam ocorrer dentro de uma criação divina. Em um relatório sobre ciência, evolução e criacionismo, a Academia Nacional de Ciências dos Estados Unidos separou explicações científicas baseadas em causas testáveis e evidências empíricas de questões religiosas sobre significado, propósito e criação, e afirmou que a aceitação da evolução pode coexistir com a fé religiosa. O relatório se concentra sobretudo na evolução biológica e no ensino do criacionismo, e não em uma rota química específica para a abiogênese.
No catolicismo, declarações do magistério recente permitem conciliar processos naturais e criação divina sem escolher um mecanismo bioquímico para a primeira vida. Em discurso à Pontifícia Academia das Ciências, o Papa Francisco afirmou que a evolução da natureza não se opõe à noção de criação e que os seres se desenvolvem segundo leis internas. O discurso tratou de evolução e cosmologia, sem endossar uma hipótese de abiogênese como o mundo do RNA, as fontes hidrotermais ou os ciclos úmido-seco. Outras denominações cristãs e outras religiões adotam posições diferentes entre si, por isso não existe uma única posição que possa ser atribuída à "religião" ou mesmo a uma tradição inteira.
Opinião pública
Como pesquisas de opinião quase nunca perguntam apenas sobre abiogênese e costumam tratar da evolução humana, da criação divina ou da idade da humanidade, seus resultados ajudam a entender a recepção pública de explicações naturalistas, mas não podem ser convertidos em porcentagens de "crença na abiogênese". Uma pessoa pode aceitar a evolução biológica e atribuir a primeira vida a uma ação divina, ou entender que essa ação teria ocorrido por processos naturais.
Nos Estados Unidos, uma pesquisa de 2005 perguntou quem ou o que seria responsável pela criação da vida na Terra. Entre os entrevistados, 78% responderam que Deus era responsável e 5% atribuíram a origem a um espírito universal ou poder superior. Como a pergunta não separava causa religiosa de mecanismo físico, a resposta "Deus" não mostra se a pessoa rejeitava processos químicos naturais.
Pesquisas posteriores continuaram a medir principalmente opiniões sobre a origem dos seres humanos. Na série da Gallup, feita com formulação semelhante desde 1982, 37% dos adultos dos Estados Unidos responderam em 2024 que Deus criou os humanos em sua forma presente nos últimos 10 mil anos. Outros 34% disseram que os humanos evoluíram com orientação divina, e 24% que evoluíram sem envolvimento de Deus. Naquela série, 37% foi o menor valor registrado para criação direta e 24% o maior para evolução sem intervenção divina.
No Religious Landscape Study de 2023-2024, 80% dos adultos dos Estados Unidos disseram que os seres humanos evoluíram. Do total da população, 47% disseram que a evolução foi guiada ou permitida por Deus ou por um poder superior, 33% disseram que Deus não teve papel no processo e 17% afirmaram que os seres humanos existem em sua forma presente desde o início dos tempos. Esses resultados mostram por que aceitação da evolução e crença em ação divina não podem ser reduzidas a duas categorias opostas.
Em um teste metodológico, a forma da pergunta mudou bastante as respostas: 31% escolheram uma resposta criacionista quando primeiro eram perguntados se os seres humanos haviam evoluído e só depois sobre a participação de Deus. Quando as três alternativas foram apresentadas juntas, evolução sem ação divina, evolução com ação divina e criação na forma presente, a parcela que rejeitou a evolução caiu para 18%. Como essas séries foram realizadas nos Estados Unidos, seus resultados não devem ser estendidos a outras populações.
Comunicação pública
A pesquisa sobre a origem da vida pode ser difícil de apresentar ao público porque reúne química, biologia, geologia, física e astronomia, ao mesmo tempo que trata de perguntas que há muito também fazem parte da filosofia e da religião. Dentro da própria ciência, existem hipóteses diferentes sobre os ambientes, moléculas e processos envolvidos, e muitas etapas permanecem sem uma explicação única. Essas incertezas fazem parte da pesquisa, mas podem ser confundidas fora do meio científico com falta de evidências ou com uma disputa sobre a possibilidade de uma origem natural da vida.
Entre 46 pesquisadores de um consórcio dedicado à origem da vida em Munique, a prioridade mais comum para a comunicação com o público era explicar os fundamentos científicos da área. Os participantes tendiam a tratar questões religiosas como distintas das controvérsias que podem ser investigadas e resolvidas pela pesquisa científica. Como todos pertenciam ao mesmo consórcio, essas respostas não podem ser tomadas como representativas de todos os pesquisadores da área, mas ajudam a mostrar um problema recorrente da divulgação da abiogênese: comunicar com clareza o que já foi demonstrado, o que permanece hipotético e quais perguntas estão fora do alcance dos métodos experimentais.
Na cultura


Na cultura popular, a origem da vida costuma ser mostrada por imagens que também aparecem na divulgação científica, como oceanos primitivos, descargas elétricas, moléculas orgânicas e a chamada "sopa primordial". A experiência de Miller e Urey ajudou a popularizar uma imagem simples da química prebiótica, embora a pesquisa tenha avançado muito além da ideia de que toda a origem da vida possa ser resumida a uma mistura oceânica submetida a raios. A expressão ainda aparece como referência histórica, enquanto as hipóteses científicas distribuem as possíveis etapas entre ambientes e mecanismos diferentes.
A panspermia também aparece com frequência na ficção porque desloca a origem ou a disseminação da vida para o espaço. As histórias podem envolver semeadura deliberada por seres extraterrestres, descoberta de ancestrais alienígenas ou transporte de organismos entre mundos. Algumas dessas narrativas lembram propostas científicas de panspermia dirigida, mas não há evidência de que uma civilização extraterrestre tenha implantado a vida terrestre.
No filme Prometheus, de Ridley Scott, ciência, religião e uma origem extraterrestre da humanidade aparecem no centro da narrativa. Uma expedição procura seres chamados "Engenheiros" depois que padrões arqueológicos são interpretados como pistas sobre a origem humana. A abertura associa esses seres à formação de vida por imagens de material genético e divisão celular, e a história contrapõe criadores biológicos, seres humanos e vida artificial. A busca pela origem humana e a criação por entidades extraterrestres orientam boa parte da trama. Obras desse tipo usam a origem da vida para explorar perguntas sobre propósito, responsabilidade dos criadores e sentido da existência, temas que não fazem parte do que a pesquisa experimental sobre abiogênese procura resolver.
Fontes
- Bada, Jeffrey L. e Lazcano, Antonio. "The Origin of Life". Em Ruse, Michael e Travis, Joseph, eds. Evolution: The First Four Billion Years. Belknap Press of Harvard University Press, 2009. ISBN 978-0-674-03175-3.
- Barton, Nicholas H., Briggs, Derek E. G., Eisen, Jonathan A., Goldstein, David B. e Patel, Nipan H. Evolution. Cold Spring Harbor Laboratory Press, 2007. ISBN 978-0-87969-684-9.
- Bastian, H. Charlton. The Modes of Origin of Lowest Organisms. Macmillan and Company, 1871. Texto digitalizado.
- Bernal, J. D. The Physical Basis of Life. Routledge & Kegan Paul, 1951.
- Bernal, J. D. "The Problem of Stages in Biopoesis". Em Florkin, M., ed. Aspects of the Origin of Life. Pergamon Press, 1960.
- Bernal, J. D. The Origin of Life. Weidenfeld & Nicolson, 1967.
- Bondeson, Jan. The Feejee Mermaid and Other Essays in Natural and Unnatural History. Cornell University Press, 1999. ISBN 978-0-8014-3609-3.
- Calvin, Melvin. Chemical Evolution: Molecular Evolution Towards the Origin of Living Systems on the Earth and Elsewhere. Clarendon Press, 1969. ISBN 978-0-19-855342-7.
- Chaichian, Masud, Rojas, Hugo Perez e Tureanu, Anca. "Physics and Life". Em Basic Concepts in Physics. Springer, 2014, pp. 353–364. ISBN 978-3-642-19597-6.
- Chang, Thomas Ming Swi. Artificial Cells: Biotechnology, Nanomedicine, Regenerative Medicine, Blood Substitutes, Bioencapsulation, and Cell/Stem Cell Therapy. World Scientific, 2007. ISBN 978-981-270-576-1.
- Dalrymple, G. Brent. "The age of the Earth in the twentieth century: a problem (mostly) solved". Em Lewis, C. L. E. e Knell, S. J., eds. The Age of the Earth: from 4004 BC to AD 2002. Geological Society of London, 2001, pp. 205–221. doi:10.1144/gsl.sp.2001.190.01.14.
- Darwin, Charles. The Life and Letters of Charles Darwin, Including an Autobiographical Chapter. 3ª edição. John Murray, 1887.
- Dobell, Clifford. Antony van Leeuwenhoek and His "Little Animals". Dover Publications, 1960.
- Dyson, Freeman. Origins of Life. Edição revista. Cambridge University Press, 1999.
- Hazen, Robert M. Genesis: The Scientific Quest for Life's Origin. Joseph Henry Press, 2005.
- Huxley, Thomas Henry. "Biogenesis and Abiogenesis". Em Discourses, Biological and Geological. Greenwood Press, 1968, obra publicada originalmente em 1897 e texto de 1870.
- Lane, Nick. Life Ascending: The Ten Great Inventions of Evolution. W. W. Norton, 2009.
- Lennox, James G. Aristotle's Philosophy of Biology: Studies in the Origins of Life Science. Cambridge University Press, 2001.
- Michod, Richard E. Darwinian Dynamics: Evolutionary Transitions in Fitness and Individuality. Princeton University Press, 1999.
- Oparin, A. I. The Origin of Life. 2ª edição. Dover Publications, 1953, obra publicada originalmente em 1938.
- Ross, Alexander. Arcana Microcosmi. Volume II. Londres, 1652. Texto.
- Sheldon, Robert B. "Historical Development of the Distinction between Bio- and Abiogenesis". Em Astrobiology and Planetary Missions. SPIE, 22 de setembro de 2005. doi:10.1117/12.663480.
- Tyndall, John. Fragments of Science. Volume 2, 6ª edição. P. F. Collier & Sons, 1905.
- Voet, Donald e Voet, Judith G. Biochemistry. Volume 1, 3ª edição. John Wiley & Sons, 2004. ISBN 978-0-471-19350-0.
- Yarus, Michael. Life from an RNA World: The Ancestor Within. Harvard University Press, 2010. ISBN 978-0-674-05075-4.


